Índice del capítulo ▾
Introducción
Una proporción considerable de las proteínas que permiten a las células comunicarse, reconocer señales, secretar moléculas y construir sus membranas atraviesa una estación molecular extraordinariamente exigente: el retículo endoplásmico.
El retículo endoplásmico —particularmente el retículo endoplásmico rugoso (RE)— no constituye simplemente un sitio donde se fabrican proteínas. Es simultáneamente una plataforma de síntesis, plegamiento, modificación, ensamblaje, inspección y control de calidad.
Cada proteína que entra en su lumen debe superar una serie de etapas antes de poder abandonar el compartimento.
Debe:
sintetizarse correctamente
↓
adquirir una conformación tridimensional adecuada
↓
formar enlaces estructurales apropiados
↓
recibir modificaciones postraduccionales
↓
ensamblarse cuando corresponda
↓
superar controles de calidad
↓
ser exportada hacia su destino.
Cuando alguna de estas etapas falla, la proteína puede quedar retenida. Si el problema es limitado, el RE intenta corregirlo. Si persiste, la proteína puede ser enviada hacia degradación. Pero si la cantidad de proteínas mal plegadas supera la capacidad del sistema, aparece una condición fundamental para este capítulo:
ESTRÉS DEL RETÍCULO ENDOPLÁSMICO
La célula responde mediante uno de sus programas adaptativos más importantes:
UNFOLDED PROTEIN RESPONSE — UPR
La UPR intenta restaurar la homeostasis mediante tres estrategias generales: reducir temporalmente la entrada de nuevas proteínas, aumentar la capacidad de plegamiento y control de calidad, y eliminar proteínas que no pueden recuperarse.
Si lo consigue, la célula sobrevive y recupera su función. Si el estrés persiste, la misma red inicialmente protectora puede favorecer inflamación, disfunción metabólica, senescencia y, en determinadas circunstancias, muerte celular.
Este cambio de adaptación a patología constituye uno de los principios centrales del CÓDICE 009.
1. El retículo endoplásmico
El retículo endoplásmico es un sistema continuo de membranas intracelulares formado por túbulos y cisternas. Tradicionalmente se divide en:
- retículo endoplásmico rugoso;
- retículo endoplásmico liso.
El RE rugoso contiene ribosomas asociados a su superficie citosólica y participa intensamente en la producción de proteínas. El RE liso posee funciones particularmente importantes en:
- metabolismo lipídico;
- síntesis de determinados lípidos y esteroides;
- metabolismo de xenobióticos;
- almacenamiento y regulación de calcio.
Sin embargo, esta división es funcional y morfológica, no absoluta. El RE constituye una red dinámica cuyas regiones pueden especializarse según el tipo y estado de la célula.
2. Una fábrica especializada de proteínas
No todas las proteínas celulares son sintetizadas hacia el RE. Muchas proteínas destinadas al citosol, núcleo, peroxisoma y mitocondria comienzan su síntesis en ribosomas libres del citoplasma.
En cambio, las proteínas destinadas a secreción, membrana plasmática, aparato de Golgi, endosomas, lisosomas y propio sistema endomembranoso entran habitualmente en la vía secretora y son dirigidas al RE.
Esto significa que el RE controla una parte extraordinariamente importante del proteoma funcional.
3. La señal que dirige una proteína hacia el RE
Muchas proteínas destinadas a la vía secretora contienen una secuencia señal. Durante la traducción, esta señal puede ser reconocida por la Signal Recognition Particle — SRP.
La SRP interactúa con la cadena naciente, el ribosoma y su receptor en la membrana del RE. El complejo es dirigido hacia el translocón.
4. SEC61: puerta de entrada al retículo endoplásmico
Uno de los principales canales de translocación es el complejo SEC61. La cadena polipeptídica naciente puede atravesar este canal hacia el lumen del RE mientras continúa siendo sintetizada.
Este proceso se denomina:
translocación cotraduccional.
En el caso de proteínas de membrana, determinadas secuencias permiten que regiones específicas queden insertadas en la bicapa lipídica. Así, desde el comienzo de la síntesis, la célula determina localización, orientación y destino inicial.
5. El plegamiento comienza mientras la proteína nace
Una proteína no necesita esperar a que termine toda su síntesis para comenzar a plegarse. A medida que la cadena emerge, determinadas regiones pueden adoptar estructuras, chaperonas pueden interactuar con ella y modificaciones pueden comenzar.
Este fenómeno de plegamiento cotraduccional reduce el espacio conformacional que la proteína necesita explorar, pero también significa que errores durante traducción o translocación pueden alterar tempranamente su destino.
6. El ambiente del RE es diferente al citosol
El lumen del RE posee características químicas especializadas:
- ambiente oxidante;
- concentraciones particulares de calcio;
- chaperonas específicas;
- enzimas de modificación;
- sistemas de control de calidad.
Estas condiciones son esenciales para que numerosas proteínas secretadas y de membrana adquieran su estructura correcta.
7. BiP/GRP78: una chaperona central
Una de las proteínas fundamentales del RE es:
BiP / GRP78
también conocida como HSPA5.
BiP pertenece a la familia HSP70 y participa en plegamiento, prevención de agregación, translocación, control de calidad y regulación de la UPR. BiP se une a regiones hidrofóbicas expuestas que normalmente quedarían ocultas dentro de una proteína correctamente plegada.
8. BiP y consumo energético
Al igual que otras HSP70, BiP funciona mediante ciclos dependientes de ATP. Esto vuelve a conectar energía celular ↔︎ capacidad de plegamiento.
Una célula sometida simultáneamente a déficit energético, disfunción mitocondrial y alta síntesis proteica puede enfrentar una situación particularmente difícil: la carga aumenta mientras disminuyen los recursos necesarios para resolverla.
9. Calnexina y calreticulina
El RE posee además un sistema especializado para determinadas glicoproteínas. Dos componentes fundamentales son:
- calnexina;
- calreticulina.
Ambas reconocen patrones específicos de glicanos unidos a proteínas recién sintetizadas. Este sistema permite vincular glicosilación ↔︎ plegamiento ↔︎ control de calidad.
10. N-glicosilación
Muchas proteínas reciben oligosacáridos en residuos específicos de asparagina. La N-glicosilación comienza en el RE.
Estos glicanos pueden influir sobre plegamiento, estabilidad, tráfico y reconocimiento por sistemas de control de calidad. El estado del glicano puede funcionar como una especie de indicador del progreso de plegamiento.
11. Ciclo calnexina–calreticulina
Las glicoproteínas recién sintetizadas pueden entrar en el ciclo de calnexina / calreticulina. Estas chaperonas ayudan a estabilizar intermediarios de plegamiento. Si la proteína todavía no ha adquirido su estructura adecuada, puede ser retenida y recibir nuevos intentos.
12. UGGT: un sensor de plegamiento
La enzima UDP-glucose:glycoprotein glucosyltransferase — UGGT puede reconocer determinadas glicoproteínas incompletamente plegadas. UGGT vuelve a añadir una glucosa al glicano, permitiendo que la proteína reingrese al ciclo calnexina-calreticulina.
13. Protein Disulfide Isomerase
Muchas proteínas secretadas necesitan enlaces disulfuro para alcanzar su estructura estable. La Protein Disulfide Isomerase — PDI participa en formación, ruptura y reorganización de estos enlaces.
14. ERO1 y equilibrio oxidativo
La formación de enlaces disulfuro requiere un ambiente oxidante. Proteínas como ERO1 participan en la regeneración de capacidad oxidativa para PDI. Sin embargo, estos procesos pueden producir especies reactivas, estableciendo una conexión directa entre plegamiento oxidativo ↔︎ homeostasis redox.
15. El RE como sistema de control de calidad
Una proteína no abandona automáticamente el RE después de sintetizarse. Debe superar controles relacionados con conformación, ensamblaje, glicosilación y enlaces disulfuro. Las proteínas correctamente plegadas pueden avanzar hacia Golgi; las defectuosas permanecen retenidas.
16. Exportación hacia el aparato de Golgi
Las proteínas aprobadas por el control de calidad pueden incorporarse a vesículas de transporte. Las cubiertas COPII participan en la exportación desde RE hacia Golgi.
17. Retención de proteínas mal plegadas
Las proteínas que no adquieren una conformación adecuada pueden permanecer asociadas a BiP, calnexina, calreticulina y otras proteínas de vigilancia. Esto evita que moléculas defectuosas alcancen membrana plasmática, lisosomas o espacio extracelular.
18. El problema de una proteína que nunca logra plegarse
La célula no puede intentar reparar indefinidamente una misma molécula. Por ello existe un punto en el cual la proteína debe abandonar el circuito de recuperación y ser eliminada. Aquí aparece:
ERAD
Endoplasmic Reticulum-Associated Degradation.
19. ERAD como extensión del control de calidad
ERAD identifica proteínas del RE que no pueden recuperarse. El proceso general incluye reconocimiento, selección, retrotranslocación o dislocación, ubiquitinación, extracción y proteasoma.
20. Diferentes tipos de defectos
Una proteína del RE puede presentar una alteración luminal, transmembrana o citosólica. Se han descrito conceptualmente ramas ERAD-L, ERAD-M y ERAD-C.
21. Reconocimiento de proteínas terminalmente mal plegadas
En determinadas glicoproteínas, el procesamiento progresivo de residuos de manosa puede favorecer su reconocimiento como sustrato de ERAD. Proteínas como EDEM y lectinas específicas participan en esta selección.
22. Retrotranslocación
Una proteína localizada en el lumen del RE no puede entrar directamente al proteasoma citosólico. Debe regresar a través o alrededor de la membrana mediante retrotranslocación o dislocación. Entre los componentes estudiados se encuentran E3 ligasas como HRD1 y gp78/AMFR.
23. HRD1
HRD1/SYVN1 constituye una E3 ubiquitina ligasa del RE con funciones importantes en ERAD. Puede participar en reconocimiento, ubiquitinación y formación de complejos de retrotranslocación.
24. p97/VCP
Una vez que el sustrato comienza a emerger hacia el citosol, la ATPasa p97/VCP puede participar en su extracción. El proceso consume ATP y conecta retrotranslocación, ubiquitinación, extracción y proteasoma 26S.
25. ERAD y proteasoma
Después de ser extraída y ubiquitinada, la proteína puede ser reconocida por el proteasoma, donde se produce desplegamiento adicional, translocación y proteólisis.
26. ERAD no puede resolverlo todo
ERAD posee capacidad finita. Cuando aumenta mucho la síntesis, se producen numerosos errores, disminuye el plegamiento, existe estrés oxidativo, se altera el calcio o falla la degradación, la cantidad de proteínas problemáticas puede superar la capacidad de eliminación.
27. ¿Qué es el estrés del retículo endoplásmico?
El estrés del retículo endoplásmico aparece cuando existe un desequilibrio entre demanda de plegamiento y capacidad del RE para procesar adecuadamente esa demanda.
CARGA PROTEICA > CAPACIDAD DE PLEGAMIENTO Y CONTROL DE CALIDAD
28. Causas de estrés del RE
Entre ellas:
- aumento intenso de síntesis proteica;
- mutaciones que generan proteínas difíciles de plegar;
- estrés oxidativo;
- alteraciones del calcio;
- hipoxia;
- cambios metabólicos;
- lipotoxicidad;
- infección;
- inflamación;
- alteraciones de glicosilación;
- disfunción de ERAD;
- envejecimiento.
29. Células secretoras: una situación especialmente exigente
Células β pancreáticas, plasmocitos, hepatocitos y células acinares pancreáticas producen enormes cantidades de proteínas secretadas y necesitan un RE particularmente desarrollado.
30. Célula β pancreática
La célula β debe sintetizar y procesar insulina en respuesta a señales metabólicas. Cuando aumenta crónicamente la demanda, también aumentan traducción, plegamiento y procesamiento secretor, contribuyendo potencialmente al estrés del RE.
31. Plasmocitos
Los plasmocitos producen grandes cantidades de inmunoglobulinas y expanden enormemente RE, capacidad de plegamiento y maquinaria secretora. La diferenciación de células B hacia plasmocitos requiere una adaptación coordinada de la UPR, especialmente mediante XBP1.
32. Hepatocitos
El hígado produce numerosas proteínas plasmáticas y posee intensa actividad metabólica. Su RE participa además en metabolismo lipídico, integrando síntesis proteica, lípidos, detoxificación y homeostasis energética.
33. El RE como reservorio de calcio
El retículo endoplásmico constituye uno de los principales depósitos intracelulares de Ca²⁺. El calcio luminal es necesario para la función de diversas proteínas y chaperonas.
34. SERCA
Las bombas SERCA — Sarco/Endoplasmic Reticulum Ca²⁺-ATPase transportan calcio desde el citosol hacia el RE y requieren ATP.
35. Liberación de calcio
El RE puede liberar calcio mediante receptores de IP3 y receptores de rianodina en determinados tejidos. La alteración persistente del calcio puede favorecer estrés del RE y disfunción mitocondrial.
36. Contactos RE–mitocondria
El RE y las mitocondrias forman regiones de contacto estrecho conocidas como mitochondria-associated membranes — MAMs, que coordinan calcio, metabolismo lipídico, dinámica mitocondrial y señalización de estrés.
37. Exceso de calcio mitocondrial
La transferencia excesiva de calcio hacia mitocondrias puede contribuir a aumento de demanda metabólica, ROS, alteración del potencial y apertura de vías de muerte celular.
38. Estrés oxidativo y RE
El plegamiento oxidativo genera condiciones que deben mantenerse cuidadosamente. El estrés oxidativo puede modificar proteínas, alterar enlaces disulfuro y saturar chaperonas. El propio plegamiento oxidativo puede generar especies reactivas.
39. Conexión con el CÓDICE 006
El problema aparece cuando producción de oxidantes > capacidad antioxidante y reparadora. Entonces aumenta el daño proteico.
40. Lipotoxicidad y membrana del RE
Alteraciones de la composición lipídica de la membrana del RE también pueden activar respuestas de estrés, modificando fluidez, composición y señalización.
41. Saturación lipídica y estrés
En modelos experimentales, determinados ácidos grasos saturados pueden favorecer estrés del RE mediante cambios de membrana, alteración del calcio, estrés oxidativo y cambios en síntesis.
42. Hipoxia
La hipoxia puede alterar el plegamiento porque numerosos procesos del RE dependen de energía, estado redox y oxígeno.
43. Inflamación
Citocinas inflamatorias pueden aumentar estrés del RE mediante ROS, cambios metabólicos, aumento de síntesis y alteraciones de calcio. A su vez, el estrés del RE puede activar vías inflamatorias.
44. Infección
Durante determinadas infecciones, los patógenos pueden utilizar la maquinaria del RE, aumentando la carga y activando programas de estrés que interactúan con inmunidad innata.
45. Mutaciones y proteínas difíciles de plegar
Una mutación puede modificar estabilidad, hidrofobicidad, enlaces o ensamblaje. Algunas enfermedades hereditarias pueden surgir por pérdida de función o por ganancia de toxicidad conformacional.
46. Pérdida de función por control de calidad
Una proteína mutada puede conservar cierta función potencial, pero ser retenida y degradada antes de alcanzar su destino. El control de calidad opera mediante umbrales.
47. El equilibrio entre permisividad y rigor
Si el control de calidad es demasiado permisivo, proteínas defectuosas escapan. Si es demasiado estricto, proteínas parcialmente funcionales pueden eliminarse.
48. Del estrés local a una respuesta global
Cuando aumenta la carga de proteínas desplegadas, la célula debe reducir nuevas entradas, aumentar chaperonas, aumentar ERAD, modificar metabolismo y coordinar autofagia. Este programa es la:
UNFOLDED PROTEIN RESPONSE.
49. La UPR no es una única vía
La UPR del RE está organizada alrededor de tres grandes sensores transmembrana:
IRE1
PERK
ATF6
50. BiP y los sensores de la UPR
BiP interactúa con componentes relacionados con los sensores de UPR. Cuando aumenta la carga de proteínas mal plegadas, cambia su disponibilidad y participa en la activación de IRE1, PERK y ATF6.
51. El modelo moderno de activación
La UPR integra múltiples señales: proteínas mal plegadas, ocupación de chaperonas, composición lipídica, estado redox, calcio y demanda secretora.
52. Primer objetivo: reducir la carga
La vía central será PERK → eIF2α, reduciendo rápidamente la traducción global.
53. Segundo objetivo: aumentar capacidad de plegamiento
Las vías IRE1–XBP1 y ATF6 participan especialmente en aumentar BiP, chaperonas, foldasas y control de calidad.
54. Tercer objetivo: aumentar eliminación
La UPR puede aumentar componentes de ubiquitinación, retrotranslocación y degradación, conectando UPR → ERAD → proteasoma.
55. Cuarto objetivo: remodelar el RE
La UPR puede promover biogénesis de membrana, expansión del compartimento y maquinaria secretora.
56. Quinto objetivo: coordinar metabolismo
La UPR modifica síntesis lipídica, metabolismo de aminoácidos, glucosa, oxidación y señalización hormonal.
57. Sexto objetivo: decidir supervivencia o muerte
Con estrés intenso, prolongado o irreversible, aparecen programas relacionados con inflamación, estrés oxidativo y apoptosis.
58. UPR adaptativa
En condiciones resolubles:
estrés del RE → UPR → traducción ↓ + chaperonas ↑ + ERAD ↑ + autofagia ↑ → carga proteotóxica ↓ → homeostasis restaurada.
59. UPR maladaptativa
Cuando el problema persiste:
estrés crónico → UPR sostenida → alteración metabólica + inflamación + ROS + CHOP → disfunción celular / muerte.
60. La duración importa
Una activación breve puede representar adaptación; una activación persistente puede indicar incapacidad de resolución.
61. Estrés del RE y envejecimiento
Con el envejecimiento pueden alterarse chaperonas, ERAD, proteasoma, autofagia, redox, mitocondrias y calcio. El RE envejecido enfrenta más carga y menor capacidad de respuesta.
62. El RE como punto de convergencia del envejecimiento
Alteraciones epigenéticas, pérdida de proteostasis, macroautofagia disminuida, desregulación de nutrient sensing, disfunción mitocondrial, senescencia e inflamación crónica pueden impactar sobre el RE.
63. Conexión con el CÓDICE 008: SASP
La actividad secretora de las células senescentes exige síntesis, plegamiento, procesamiento y tráfico, generando senescencia → SASP → estrés secretor → proteostasis del RE.
64. Conexión con el CÓDICE 007
Si ERAD y proteasoma no eliminan toda la carga, la autofagia y la reticulofagia/ER-phagy pueden eliminar agregados o regiones dañadas del propio retículo.
65. Conexión con el CÓDICE 005
Las mitocondrias proporcionan ATP para BiP, SERCA, degradación y transporte. A su vez, el RE regula calcio mitocondrial.
66. Conexión con el CÓDICE 004
Inflammaging aumenta presión sobre el RE y el estrés del RE puede aumentar inflamación.
67. Conexión con el CÓDICE 003
La capacidad de activar genes de BiP, XBP1, ERAD y chaperonas depende de regulación transcripcional y epigenética.
68. Reserva del Retículo Endoplásmico
Dentro de la Reserva Proteostática puede conceptualizarse una RESERVA DEL RETÍCULO ENDOPLÁSMICO: capacidad de plegamiento, chaperonas, ERAD, calcio, energía, expansión del RE, capacidad de activar UPR y capacidad de resolverla.
69. Un modelo de reserva
Demanda basal < Capacidad del RE = homeostasis.
Durante estrés: Demanda ↑ + UPR → capacidad ↑ = adaptación.
Durante envejecimiento o enfermedad: Demanda ↑↑ + Reserva ↓ = estrés crónico del RE.
70. Del concepto molecular al concepto clínico
Actualmente no existe una prueba clínica rutinaria capaz de medir directamente la “Reserva del RE”. La mayoría de los estudios utilizan biopsias, cultivos, expresión génica, proteínas de UPR y modelos experimentales.
Integración con los Hallmarks del Envejecimiento
La primera parte conecta el estrés del RE con pérdida de proteostasis, disfunción mitocondrial, alteraciones epigenéticas, desregulación de nutrient sensing, macroautofagia disminuida, senescencia celular, inflamación crónica, agotamiento de células madre y comunicación intercelular alterada.
Integración con el Modelo IXUGEN®
Dentro del Modelo IXUGEN®, el retículo endoplásmico constituye un nodo particularmente importante de la Reserva Molecular, conectado con Reserva Metabólica, Reserva Inmunológica, Reserva Regenerativa y Reserva Funcional.
Aplicaciones Clínicas
El estrés del RE participa en enfermedades metabólicas, neurodegeneración, enfermedad hepática, trastornos cardiovasculares, inflamación crónica, determinados cánceres y enfermedades causadas por proteínas mutadas. Detectar una vía de UPR activada no significa automáticamente que sea la causa primaria de la enfermedad.
Mito
“El retículo endoplásmico simplemente almacena proteínas antes de secretarlas.”
Realidad
Es un centro activo de síntesis, plegamiento, modificación, control de calidad, señalización y metabolismo.
Mito
“Toda proteína mal plegada activa inmediatamente la UPR.”
Realidad
Las células manejan continuamente proteínas defectuosas; la UPR aparece cuando la carga amenaza la homeostasis del RE.
Mito
“ERAD ocurre dentro del retículo endoplásmico.”
Realidad
Los sustratos deben ser trasladados al citosol, ubiquitinados y degradados principalmente por el proteasoma.
Mito
“La UPR es una respuesta patológica.”
Realidad
Su función inicial es adaptativa y participa incluso en procesos fisiológicos normales.
Mito
“El estrés del RE se debe exclusivamente a proteínas mal plegadas.”
Realidad
También puede relacionarse con alteraciones de lípidos, calcio, redox, metabolismo y energía.
Mito
“Activar la UPR significa que la célula está destinada a morir.”
Realidad
Las respuestas iniciales buscan restaurar homeostasis; la señalización proapoptótica aparece especialmente cuando el estrés es intenso o persistente.
El retículo endoplásmico funciona como una frontera molecular entre síntesis y función. No basta con producir una proteína: debe plegarse, modificarse, ensamblarse y superar controles antes de incorporarse al organismo. La UPR representa el sistema mediante el cual la célula reconoce que esta frontera está siendo sobrepasada y redistribuye recursos para recuperar el equilibrio. El envejecimiento reduce progresivamente el margen entre demanda y capacidad, haciendo que desafíos antes tolerables puedan convertirse en estrés persistente.
- El RE controla gran parte del proteoma secretado y de membrana.
- BiP/GRP78 constituye una chaperona central del lumen del RE.
- Calnexina y calreticulina participan en el control de calidad de glicoproteínas.
- PDI regula la formación y reorganización de enlaces disulfuro.
- El plegamiento oxidativo conecta directamente proteostasis y redox.
- ERAD conecta el RE con ubiquitina y proteasoma.
- p97/VCP participa en la extracción de determinados sustratos de ERAD.
- El estrés del RE representa un desequilibrio entre demanda y capacidad.
- Calcio y ATP son fundamentales para la función del RE.
- El RE y las mitocondrias mantienen comunicación estrecha.
- La UPR es inicialmente adaptativa.
- IRE1, PERK y ATF6 constituyen sus tres sensores principales.
- La persistencia del estrés puede transformar adaptación en patología.
- La capacidad de resolver la UPR es una dimensión de la Reserva Proteostática.
- El RE es un centro de síntesis, plegamiento y control de calidad.
- Gran parte de las proteínas secretadas y de membrana atraviesan este compartimento.
- El plegamiento comienza durante la propia síntesis.
- BiP, calnexina, calreticulina y PDI forman parte de su maquinaria de calidad.
- La N-glicosilación participa activamente en vigilancia conformacional.
- Las proteínas irreparables pueden dirigirse a ERAD.
- ERAD conecta RE, ubiquitina, p97/VCP y proteasoma.
- El estrés del RE aparece cuando la demanda supera la capacidad de procesamiento.
- Proteínas, lípidos, calcio, redox y energía pueden contribuir al estrés.
- RE y mitocondrias forman una unidad funcional estrechamente comunicada.
- La UPR intenta inicialmente recuperar la homeostasis.
- IRE1, PERK y ATF6 constituyen los tres grandes sensores de la UPR.
- El estrés crónico puede convertir una respuesta protectora en una respuesta maladaptativa.
- El envejecimiento puede combinar mayor carga con menor capacidad de resolución.
- La Reserva del RE constituye una dimensión funcional de la Reserva Proteostática.
Introducción
Cuando la carga proteica del retículo endoplásmico supera su capacidad de plegamiento, la célula necesita convertir un problema localizado dentro de un organelo en una respuesta coordinada capaz de modificar su fisiología completa.
Una de las principales vías encargadas de esta tarea es:
IRE1–XBP1
IRE1 es uno de los sensores más antiguos y evolutivamente conservados de la Unfolded Protein Response (UPR). Su importancia radica en que combina dos funciones dentro de una misma proteína:
- actividad quinasa;
- actividad endorribonucleasa.
Esto le permite detectar estrés en el lumen del RE y traducirlo en modificaciones de señalización y expresión génica.
La consecuencia más característica es el procesamiento no convencional del ARN mensajero de:
XBP1 — X-box Binding Protein 1
que genera un factor de transcripción altamente activo denominado:
XBP1s
La acción de XBP1s permite ampliar la capacidad del retículo para plegar proteínas, eliminar proteínas defectuosas, expandir membranas, adaptar la maquinaria secretora y remodelar el metabolismo.
cuando la demanda aumenta, la célula intenta primero expandir su capacidad antes de aceptar el fracaso.
Sin embargo, IRE1 no es exclusivamente adaptativo. Cuando el estrés persiste, su actividad puede cambiar en intensidad, duración y tipo de sustratos, favoreciendo degradación de ARN, inflamación, activación de JNK, disfunción metabólica y muerte celular.
1. ¿Qué es IRE1?
IRE1 significa Inositol-Requiring Enzyme 1. En mamíferos existen IRE1α e IRE1β. La forma más ampliamente expresada y estudiada es:
IRE1α
codificada por ERN1.
IRE1α es una proteína transmembrana del RE con dominio luminal, segmento transmembrana, dominio citosólico con actividad quinasa y dominio RNasa.
2. El dominio luminal: percepción del estrés
La región luminal de IRE1 está expuesta al ambiente interno del RE. Cuando aumentan proteínas desplegadas o alteraciones de membrana, cambia el estado de IRE1. La regulación puede involucrar interacción con BiP, unión directa o indirecta a proteínas mal plegadas, cambios de membrana y concentración local de sensores.
3. BiP e IRE1
BiP/GRP78 puede interactuar con el dominio luminal de IRE1 en condiciones basales. El modelo clásico propone BiP unida → IRE1 inactivo y BiP reclutada por proteínas desplegadas → IRE1 activado, aunque la activación real es más compleja.
4. Oligomerización de IRE1
Durante estrés, IRE1 puede aproximarse, dimerizar y formar oligómeros de mayor orden. Esto permite activar su dominio citosólico.
5. Autofosforilación
El dominio quinasa puede sufrir trans-autofosforilación, favoreciendo la actividad RNasa:
estrés del RE → oligomerización → autofosforilación → RNasa activa.
6. Actividad RNasa
La función más característica de IRE1 es su actividad endorribonucleasa. Su principal sustrato adaptativo es el ARN mensajero de XBP1. IRE1 realiza un splicing no convencional de XBP1.
7. XBP1u y XBP1s
Antes del procesamiento se genera XBP1u — unspliced XBP1. Después del corte y religación se produce un cambio de marco de lectura y aparece XBP1s — spliced XBP1, un factor de transcripción activo.
8. El cambio de marco de lectura
Un corte preciso de ARN puede transformar la identidad funcional de la proteína producida, permitiendo que XBP1s entre al núcleo.
9. XBP1s como factor de transcripción
XBP1s modifica la expresión de genes relacionados con chaperonas, ERAD, biosíntesis de membrana, metabolismo lipídico, biogénesis secretora y transporte proteico.
10. Expansión física del retículo endoplásmico
XBP1s puede favorecer síntesis de fosfolípidos, expansión de membranas y aumento del volumen del RE. La célula literalmente amplía su infraestructura.
11. XBP1 y células secretoras
El eje IRE1–XBP1 es especialmente importante en células altamente secretoras, como plasmocitos. Durante la diferenciación de linfocitos B, XBP1s expande RE, maquinaria de plegamiento y capacidad secretora.
12. XBP1 y hepatocitos
En hígado, XBP1 coordina síntesis de proteínas, metabolismo lipídico y función secretora, conectando UPR con lípidos, glucosa, resistencia a insulina y MASLD.
13. XBP1 y células β pancreáticas
Las células β necesitan adaptar su RE a cambios de demanda de insulina. Frente a incrementos fisiológicos: demanda ↑ → UPR adaptativa → capacidad secretora ↑. Cuando la demanda es crónica, la adaptación puede dejar de ser suficiente.
14. El concepto de adaptación secretora
La UPR participa también en fisiología normal. El estrés patológico aparece cuando la demanda excede persistentemente la capacidad adaptativa.
15. XBP1 y ERAD
XBP1s aumenta la expresión de componentes de ERAD:
IRE1 → XBP1s → ERAD ↑ → carga proteica ↓.
16. Más capacidad de plegamiento y más capacidad de eliminación
La adaptación efectiva necesita plegar más y eliminar mejor.
17. XBP1 y biogénesis de membrana
La adaptación proteostática también requiere más RE, Golgi, vesículas y tráfico, conectando UPR con remodelación de membranas.
18. IRE1 no solo procesa XBP1
La RNasa de IRE1 puede actuar sobre otros ARN mediante:
RIDD
Regulated IRE1-Dependent Decay.
19. ¿Qué función cumple RIDD?
RIDD puede reducir la entrada de nuevas proteínas al retículo degradando determinados ARN mensajeros:
ARN ↓ → traducción de proteínas dirigidas al RE ↓ → carga del RE ↓.
20. XBP1 versus RIDD
XBP1 splicing suele asociarse con expansión adaptativa; RIDD reduce determinados ARN y puede disminuir carga. La relación depende de intensidad, duración, oligomerización y tipo celular.
21. RIDD adaptativo
En estrés moderado, RIDD puede representar una reducción estratégica de carga.
22. RIDD excesivo
Si IRE1 permanece intensamente activado, RIDD puede volverse más amplio y afectar ARN necesarios para función, supervivencia y metabolismo.
23. MicroARN y RIDD
IRE1 también puede afectar determinados microARN, modificando regulación de apoptosis, señalización y estrés.
24. IRE1 como plataforma de señalización
IRE1 puede interactuar con proteínas adaptadoras como:
TRAF2
y activar rutas relacionadas con JNK, NF-κB e inflamación.
25. IRE1–TRAF2–JNK
IRE1 → TRAF2 → JNK puede contribuir a respuestas de estrés, inflamación, metabolismo y apoptosis.
26. JNK y resistencia a la insulina
En obesidad, inflamación y estrés del RE, la activación persistente de JNK puede contribuir a deterioro de señalización de insulina.
27. IRE1 y NF-κB
IRE1 puede contribuir a activar NF-κB, conectando estrés proteotóxico local con inflamación celular y señalización sistémica.
28. UPR e inflammaging
La activación crónica de vías UPR puede contribuir a ambiente proinflamatorio y generar el ciclo:
inflamación → estrés del RE → IRE1/JNK/NF-κB → más inflamación.
29. IRE1 y apoptosis
IRE1 no es un receptor apoptótico simple. Su activación inicial suele ser adaptativa, pero el estrés prolongado puede favorecer JNK, RIDD extenso y señales proapoptóticas.
30. La duración de la señal
IRE1 → XBP1s → adaptación en estrés transitorio, frente a IRE1 sostenido → RIDD ampliado + JNK + inflamación en estrés persistente.
31. Intensidad de oligomerización
Estados de activación moderada pueden favorecer principalmente XBP1; estados más intensos pueden ampliar el espectro de RIDD.
32. IRE1 como medidor de carga
IRE1 puede interpretarse como sensor de la relación entre carga del RE y capacidad disponible.
33. IRE1 y autofagia
IRE1–JNK puede interactuar con mecanismos de autofagia, conectando UPR con reducción de carga celular.
34. ER-phagy
La autofagia selectiva del retículo permite eliminar regiones del RE durante recuperación tras expansión, estrés o daño.
35. IRE1 y mitocondrias
La activación de IRE1 puede afectar mitocondrias mediante calcio, JNK, inflamación y metabolismo; la disfunción mitocondrial aumenta estrés redox y limita ATP.
36. IRE1 y MAMs
IRE1 puede interactuar funcionalmente en regiones de contacto RE–mitocondria, coordinando calcio, lípidos y señales de estrés.
37. IRE1 y metabolismo lipídico
XBP1s regula genes relacionados con síntesis lipídica, membranas y metabolismo hepático.
38. Lipogénesis y expansión del RE
Una célula que aumenta RE necesita sintetizar fosfolípidos y membranas. XBP1 coordina parte de esta respuesta.
39. XBP1 y glucosa
XBP1 se ha relacionado con metabolismo de glucosa, gluconeogénesis y sensibilidad a insulina, con efectos dependientes del tejido y contexto.
40. Estrés del RE y obesidad
Obesidad puede producir lipotoxicidad, inflamación, hiperinsulinemia, cambios de membrana y estrés oxidativo, aumentando presión sobre el RE.
41. IRE1 en tejido adiposo
La UPR participa en adaptación del tejido adiposo a almacenamiento lipídico, señalización endocrina e inflamación.
42. IRE1 en hígado y MASLD
En MASLD confluyen exceso lipídico, resistencia a insulina, estrés oxidativo, inflamación y estrés del RE.
43. IRE1 en sistema inmunológico
La vía IRE1–XBP1 participa en plasmocitos, células dendríticas, macrófagos y otras poblaciones inmunes.
44. XBP1 en plasmocitos
XBP1s expande retículo, chaperonas y maquinaria secretora para sostener producción de anticuerpos.
45. XBP1 e inmunidad innata
En macrófagos y otras células, XBP1 puede modificar producción de citocinas, respuesta a patógenos y metabolismo.
46. IRE1 y cáncer
Las células tumorales pueden depender de IRE1–XBP1 para adaptarse a hipoxia, déficit de nutrientes, alta síntesis, mutaciones y acidosis.
47. XBP1 y microambiente tumoral
XBP1 puede modificar células tumorales y células inmunes del microambiente, influyendo sobre metabolismo, inmunosupresión y supervivencia.
48. Inhibición farmacológica de IRE1
Se investigan compuestos dirigidos contra actividad quinasa o RNasa, pero la inhibición sistémica indiscriminada podría afectar funciones fisiológicas esenciales.
49. Activación farmacológica de XBP1
También se investiga aumentar funciones adaptativas de XBP1, pero podría favorecer supervivencia de células patológicas en determinados contextos.
50. IRE1 y enfermedades neurodegenerativas
IRE1 se estudia en Alzheimer, Parkinson, ELA y enfermedades priónicas. Su papel varía según etapa, proteína, célula e intensidad de estrés.
51. XBP1 y neuronas
XBP1 puede participar en adaptación, metabolismo y plasticidad neuronal.
52. IRE1 y sarcopenia
La UPR participa en adaptación muscular frente a ejercicio, nutrientes, reparación y estrés metabólico.
53. Ejercicio y UPR
El ejercicio puede producir activación transitoria de componentes de UPR como respuesta hormética.
54. UPR como ejemplo de hormesis
ejercicio / estrés moderado → UPR transitoria → adaptación → mayor capacidad futura, frente a estrés metabólico crónico → UPR persistente → inflamación / disfunción.
55. IRE1 y envejecimiento
La respuesta se remodela con la edad y puede perder precisión temporal.
56. Pérdida de resolución
Una respuesta adaptativa puede tardar más en apagarse, generando RIDD excesivo, inflamación y alteraciones metabólicas.
57. IRE1 y senescencia
estrés del RE → senescencia → SASP → nueva demanda secretora constituye un circuito potencial.
58. IRE1 y SASP
Las vías UPR pueden ayudar a sostener la maquinaria secretora del SASP y también contribuir a señales inflamatorias.
59. IRE1 y células madre
Las células madre necesitan adaptar su proteoma al pasar de quiescencia a activación y diferenciación; una respuesta UPR desregulada puede favorecer pérdida de identidad, estrés y agotamiento.
60. Integración con el sistema ubiquitina–proteasoma
IRE1–XBP1 aumenta componentes de ERAD y redistribuye carga hacia UPS.
61. Integración con autofagia
Cuando la carga supera ERAD y UPS, la autofagia proporciona rutas adicionales para agregados, regiones del RE y organelos dañados.
62. Integración con HSF1
HSF1 controla principalmente chaperonas citosólicas e IRE1–XBP1 adaptación del RE; ambos responden al estrés proteotóxico en compartimentos distintos.
63. Integración con NRF2
El estrés del RE aumenta presión oxidativa; NRF2 coopera con UPR para reducir oxidación y daño.
Integración con los Hallmarks del Envejecimiento
IRE1–XBP1 se conecta con pérdida de proteostasis, alteraciones epigenéticas, nutrient sensing, disfunción mitocondrial, macroautofagia disminuida, senescencia celular, agotamiento de células madre, inflamación crónica y comunicación intercelular alterada.
Integración con el Modelo IXUGEN®
En el Modelo IXUGEN®, IRE1–XBP1 representa un mecanismo de expansión de la Reserva Molecular, dependiente de Reserva Metabólica, Inmunológica, Regenerativa y Funcional.
Aplicaciones Clínicas
IRE1 y XBP1 se investigan como biomarcadores moleculares, dianas farmacológicas, indicadores de estrés del RE y moduladores de procesos metabólicos, tumorales y neurodegenerativos. No existe una indicación clínica general para “activar XBP1” o “inhibir IRE1” como estrategia de longevidad.
Mito
“IRE1 únicamente detecta proteínas mal plegadas.”
Realidad
Puede integrar también señales relacionadas con membrana, lípidos y estado general del RE.
Mito
“La función principal de IRE1 es inducir apoptosis.”
Realidad
Su función inicial más importante es adaptativa mediante XBP1s y expansión de capacidad proteostática.
Mito
“XBP1 aparece únicamente durante enfermedad.”
Realidad
Es esencial para la diferenciación fisiológica de células altamente secretoras como plasmocitos.
Mito
“RIDD siempre es perjudicial.”
Realidad
En estrés moderado puede ayudar a reducir carga de ARN y proteínas dirigidas al RE.
Mito
“IRE1 activado significa necesariamente más inflamación.”
Realidad
El resultado depende del equilibrio entre XBP1 adaptativo, RIDD, JNK y duración de la señal.
Mito
“Activar XBP1 podría utilizarse de manera general para rejuvenecer el RE.”
Realidad
No existe evidencia clínica que justifique ese uso general y la vía puede favorecer supervivencia tumoral en determinados contextos.
IRE1 ilustra cómo una célula convierte el estrés en una decisión. Una activación moderada amplía la capacidad del retículo mediante XBP1s; una activación intensa reduce nuevas cargas mediante RIDD; una señal que persiste demasiado tiempo puede transformarse en inflamación y disfunción. La Resiliencia Molecular no depende simplemente de activar IRE1, sino de utilizar la intensidad y duración adecuadas para resolver el problema y volver posteriormente a la homeostasis.
- IRE1 posee actividad quinasa y RNasa.
- IRE1α es la isoforma más ampliamente expresada.
- El splicing no convencional de XBP1 genera XBP1s.
- XBP1s expande capacidad secretora y proteostática del RE.
- XBP1 aumenta componentes de ERAD.
- RIDD puede disminuir la carga de ARN dirigido al RE.
- RIDD excesivo puede contribuir a disfunción.
- IRE1 puede activar JNK y vías inflamatorias.
- La duración de la señal modifica su significado biológico.
- IRE1–XBP1 participa en plasmocitos, hepatocitos y células β.
- La vía conecta proteostasis, inmunidad y metabolismo.
- La activación crónica puede contribuir a inflammaging.
- IRE1 constituye un mecanismo de adaptación, no simplemente una señal de daño.
- La capacidad de apagar la vía después de resolver el estrés es parte de la resiliencia.
- IRE1 es uno de los tres grandes sensores de la UPR.
- Su arquitectura conecta el lumen del RE con señalización citosólica.
- El estrés favorece oligomerización y autofosforilación.
- Su RNasa realiza el splicing no convencional de XBP1.
- XBP1s es un factor de transcripción adaptativo.
- XBP1s aumenta chaperonas, ERAD y capacidad secretora.
- XBP1 favorece expansión física del RE.
- RIDD permite disminuir determinados ARN y reducir carga.
- RIDD puede ser adaptativo o maladaptativo según intensidad.
- IRE1 interactúa con TRAF2, JNK y NF-κB.
- La vía conecta UPR con inflamación y metabolismo.
- IRE1–XBP1 es esencial en células secretoras especializadas.
- El envejecimiento puede alterar la precisión temporal de esta respuesta.
- La señal adaptativa se vuelve patológica cuando no puede resolverse.
- IRE1–XBP1 constituye una expresión molecular de la Reserva Proteostática y la Resiliencia Biológica.
Introducción
Cuando el retículo endoplásmico se encuentra sobrecargado, una de las estrategias más rápidas y lógicas consiste en reducir temporalmente la entrada de nuevas proteínas. Si la capacidad de plegamiento resulta insuficiente frente a la demanda, seguir produciendo proteínas al mismo ritmo solo empeora el desequilibrio.
La rama:
PERK → eIF2α
permite frenar de forma rápida la traducción global.
Mientras disminuye la producción de muchas proteínas, aumenta selectivamente la traducción de ciertos ARN mensajeros relacionados con la adaptación al estrés, entre ellos:
ATF4
ATF4 activa programas que ayudan a conservar aminoácidos, equilibrio redox, metabolismo, autofagia y supervivencia.
Si el estrés persiste, la misma vía puede favorecer la expresión de:
CHOP
y desplazar la respuesta desde adaptación hacia estrés oxidativo, alteraciones metabólicas y apoptosis.
una respuesta protectora puede transformarse en patológica cuando la intensidad o duración del estrés supera la capacidad de resolución.
1. ¿Qué es PERK?
PERK significa PKR-like Endoplasmic Reticulum Kinase y está codificada por EIF2AK3. Es una proteína transmembrana del RE con dominio luminal, segmento transmembrana y dominio quinasa citosólico.
2. PERK en condiciones basales
En homeostasis, PERK permanece relativamente inactiva. BiP/GRP78 participa en su regulación. Cuando aumenta la carga de proteínas mal plegadas, PERK puede aproximarse, dimerizar, oligomerizar y autofosforilarse.
3. Activación de PERK
estrés del RE → PERK activada → fosforilación de eIF2α.
Su objetivo inicial es reducir la cantidad de nuevas proteínas que entran a la maquinaria de plegamiento.
4. eIF2 y la iniciación de la traducción
El factor eIF2 participa en la iniciación de la síntesis proteica y una de sus subunidades es eIF2α. La fosforilación de eIF2α modifica profundamente la eficiencia de iniciación de la traducción.
5. Fosforilación de eIF2α
PERK fosforila eIF2α en un residuo crítico, reduciendo la regeneración eficiente del complejo activo de eIF2. Como consecuencia:
TRADUCCIÓN GLOBAL ↓
6. ¿Por qué reducir la traducción ayuda?
Reducir temporalmente la producción permite liberar chaperonas, procesar proteínas acumuladas, activar ERAD y recuperar capacidad. Es un mecanismo de descompresión proteostática.
7. Una respuesta extraordinariamente rápida
La fosforilación de eIF2α puede modificar traducción en minutos, ganando tiempo mientras otras ramas de UPR preparan una adaptación más profunda.
8. PERK no busca detener permanentemente la síntesis
La reducción de traducción debe ser temporal, reversible y ajustada a la intensidad del estrés. La clave es ganar tiempo, no detener indefinidamente la fábrica.
9. La paradoja de ATF4
Algunos ARN mensajeros están organizados de manera que la fosforilación de eIF2α favorece su traducción. El ejemplo principal es:
ATF4 — Activating Transcription Factor 4
Así, traducción global ↓ pero proteínas adaptativas específicas ↑.
10. upstream Open Reading Frames
El ARN mensajero de ATF4 contiene uORFs — upstream Open Reading Frames. Cuando eIF2α está fosforilado, cambia la dinámica de reinicio ribosomal y se favorece la traducción de ATF4.
11. ATF4 como factor de transcripción
ATF4 activa genes relacionados con metabolismo de aminoácidos, síntesis de glutatión, transporte de nutrientes, respuesta redox, autofagia, adaptación metabólica y supervivencia.
12. ATF4 y aminoácidos
ATF4 aumenta expresión de genes relacionados con transporte, biosíntesis y metabolismo de aminoácidos, redistribuyendo recursos hacia reparación, antioxidantes y síntesis selectiva.
13. ATF4 y glutatión
ATF4 puede aumentar genes relacionados con disponibilidad y metabolismo de cisteína, glutamato y glicina, ayudando a sostener:
homeostasis redox.
14. PERK y NRF2
PERK puede favorecer estabilización/activación de NRF2 en determinados contextos, ampliando defensa antioxidante.
15. El estrés del RE genera estrés redox
Cuando el RE procesa gran cantidad de proteínas, aumenta plegamiento oxidativo y actividad metabólica, pudiendo generar ROS. ATF4 y NRF2 ayudan a contener el problema.
16. ATF4 y autofagia
ATF4 puede aumentar genes asociados con autofagia, degradación y adaptación al ayuno:
PERK → ATF4 → autofagia.
17. Integrated Stress Response
PERK no es la única quinasa capaz de fosforilar eIF2α. En mamíferos destacan:
- PERK;
- GCN2;
- PKR;
- HRI.
Todas convergen sobre eIF2α. Este sistema recibe el nombre de:
Integrated Stress Response — ISR.
18. Las cuatro quinasas de eIF2α
PERK
Responde principalmente a estrés del retículo.
GCN2
Responde especialmente a déficit de aminoácidos y ribosomas descargados.
PKR
Se activa principalmente durante determinadas respuestas antivirales.
HRI
Responde clásicamente a disponibilidad de hemo y otros estresores.
19. La UPR está integrada con el estrés celular general
Una célula puede enfrentar simultáneamente déficit nutricional, infección, estrés oxidativo y proteínas mal plegadas. La ISR integra estas señales.
20. GCN2 y disponibilidad de aminoácidos
Cuando determinados aminoácidos son escasos, aumenta ARN de transferencia no cargado y GCN2 puede activar GCN2 → eIF2α → ATF4. Por eso, un aumento de ATF4 no demuestra por sí solo UPR del RE.
21. PKR e infección viral
PKR puede activarse por ARN de doble cadena en contextos virales. La reducción de traducción ayuda a limitar la producción de proteínas virales.
22. HRI
HRI fue estudiada inicialmente en eritroides como sensor de disponibilidad de hemo y actualmente se reconoce que participa también en otros tipos de estrés.
23. ATF4 y adaptación metabólica
ATF4 favorece transporte de aminoácidos, síntesis de serina, metabolismo de un carbono y defensa antioxidante, manteniendo precursores para glutatión, nucleótidos y reparación.
24. ATF4 y metabolismo de un carbono
Las vías de serina, glicina, folato y metionina participan en producción de nucleótidos, grupos metilo, NADPH y glutatión, conectando proteostasis con metabolismo, epigenética y redox.
25. ATF4 y epigenética
Los cambios metabólicos inducidos por ATF4 pueden modificar disponibilidad de SAM, acetil-CoA, α-cetoglutarato y NAD+, demostrando que metabolismo y expresión génica son inseparables.
26. La respuesta necesita terminar
Una vez resuelto el estrés, la traducción debe restaurarse mediante desfosforilación de eIF2α. Uno de los principales mecanismos involucra:
GADD34.
27. GADD34
GADD34, también conocida como PPP1R15A, forma un complejo con PP1 para favorecer desfosforilación de eIF2α:
PERK → eIF2α-P → ATF4 → GADD34 ↑ → eIF2α desfosforilada → traducción restaurada.
28. La recuperación de traducción
Restaurar la traducción es esencial cuando vuelve la homeostasis, pero si se reanuda producción mientras el problema continúa puede aumentar nuevamente la carga.
29. La paradoja de GADD34 en estrés persistente
Durante estrés prolongado, GADD34 puede restaurar traducción antes de que el RE haya recuperado suficiente capacidad, aumentando síntesis, carga del RE y demanda oxidativa.
30. CHOP
Uno de los principales factores relacionados con la fase maladaptativa es:
CHOP
también denominado DDIT3 o GADD153.
31. CHOP no es simplemente "la proteína de apoptosis"
CHOP participa en remodelación transcripcional, metabolismo, respuesta redox y recuperación de traducción. Representa mejor una señal de estrés no resuelto y transición maladaptativa.
32. ATF4–CHOP
Durante estrés sostenido:
ATF4 ↑ → CHOP ↑ → cambios en traducción, oxidación, metabolismo y apoptosis.
33. CHOP y proteínas de la familia BCL-2
CHOP puede modificar el equilibrio entre señales proapoptóticas y antiapoptóticas, sensibilizando la célula frente a muerte cuando el daño es irreversible.
34. BIM
CHOP puede favorecer expresión de BIM en determinados contextos, conectando estrés del RE con vía mitocondrial de apoptosis.
35. BCL-2
CHOP puede reducir señales antiapoptóticas relacionadas con BCL-2 en determinados modelos, desplazando la respuesta desde reparar hacia eliminar la célula.
36. CHOP y ERO1α
CHOP puede aumentar ERO1α, elevando presión oxidativa:
CHOP → ERO1α ↑ → ROS ↑.
37. CHOP y calcio
ERO1α puede influir sobre señalización de calcio del RE:
CHOP → ERO1α → Ca²⁺ → mitocondria → ROS/apoptosis.
38. El cambio de adaptación a apoptosis
Estrés resoluble
PERK → eIF2α → traducción ↓ → ATF4 → adaptación → homeostasis
Estrés persistente
PERK sostenida → ATF4/CHOP ↑ → GADD34 + recuperación de traducción → carga ↑ + ROS ↑ → mitocondria / apoptosis.
39. PERK y apoptosis mitocondrial
La mitocondria integra estrés redox, calcio, señales BCL-2 y estado energético. Si el umbral se supera, puede producirse permeabilización de membrana externa y activación de apoptosis.
40. Caspasas
La vía mitocondrial puede culminar en liberación de citocromo c, activación de caspasas y desmontaje ordenado de la célula. La apoptosis puede interpretarse como control de calidad de nivel superior.
41. De proteostasis a control de calidad celular
Existe una jerarquía:
proteostasis → organelo → célula → tejido.
Primero se controlan proteínas; si no es suficiente, organelos; si el daño persiste, la célula detiene proliferación o se elimina.
42. PERK y senescencia
El estrés persistente no siempre produce apoptosis; puede favorecer arresto celular, senescencia o adaptación crónica.
43. CHOP y senescencia
CHOP no es un marcador específico de senescencia, pero puede coexistir con p53, p21 y p16INK4a.
44. PERK e inflamación
PERK puede contribuir a inflamación mediante NF-κB, estrés oxidativo, ATF4 y CHOP.
45. PERK y NF-κB
Cuando se reduce traducción, IκB puede disminuir mientras NF-κB permanece disponible, facilitando activación inflamatoria.
46. CHOP e inflamación
En estrés persistente, CHOP puede contribuir a producción de mediadores, daño tisular y alteración inmune.
47. PERK y sistema inmunológico
Las células inmunes experimentan grandes cambios de traducción durante activación. La ISR adapta síntesis, metabolismo y respuesta a infección.
48. PERK en macrófagos
PERK–ATF4 puede interactuar con inflamación, metabolismo y estrés oxidativo. Una respuesta aguda puede ser adaptativa y una persistente proinflamatoria.
49. PERK y células dendríticas
La UPR ayuda a sostener el procesamiento de proteínas, secreción y presentación antigénica.
50. PERK y metabolismo
PERK modifica metabolismo mediante ATF4, NRF2, reducción de traducción y cambios en aminoácidos.
51. PERK y resistencia a insulina
En obesidad y estrés metabólico, la activación crónica del RE puede contribuir a señalización inflamatoria, JNK y resistencia a insulina.
52. Célula β y PERK
La función de células β depende de equilibrar síntesis de insulina, demanda metabólica y capacidad de plegamiento. PERK es esencial para su supervivencia bajo estrés secretor.
53. Síndrome de Wolcott–Rallison
Mutaciones bialélicas en EIF2AK3 pueden producir el síndrome de Wolcott–Rallison, que incluye diabetes neonatal, demostrando la importancia clínica de PERK.
54. PERK y hueso
El síndrome también puede presentar alteraciones esqueléticas, reflejando funciones de PERK más allá del páncreas.
55. PERK y neurodegeneración
Una activación excesiva o persistente de PERK–eIF2α puede reducir síntesis de proteínas necesarias para plasticidad, memoria y función neuronal.
56. Traducción y memoria
La formación de memoria requiere síntesis proteica; una inhibición crónica puede interferir con plasticidad sináptica, consolidación y reparación neuronal.
57. Inhibición de PERK en neurodegeneración
Modelos experimentales han estudiado inhibición de PERK para restaurar traducción, pero la inhibición sistémica puede producir toxicidades importantes.
58. ISRIB
ISRIB
Integrated Stress Response Inhibitor actúa aguas abajo de eIF2α modulando eIF2B y puede restaurar parcialmente traducción en determinados contextos experimentales.
59. ISRIB y memoria
En modelos animales ha mostrado efectos sobre aprendizaje y memoria, pero sigue siendo una herramienta de investigación y no una terapia establecida para envejecimiento.
60. El peligro de bloquear una respuesta protectora
Bloquear ISR/PERK indiscriminadamente puede permitir que continúe la síntesis mientras el RE está sobrecargado, aumentando misfolding, estrés y muerte celular.
61. PERK y cáncer
Las células tumorales pueden utilizar PERK para sobrevivir a hipoxia, déficit energético, estrés oxidativo y alta demanda de síntesis.
62. ATF4 y metabolismo tumoral
ATF4 puede favorecer captación de aminoácidos, síntesis de glutatión y adaptación a hipoxia, ayudando a células malignas a tolerar ambientes extremos.
63. PERK y angiogénesis
La adaptación tumoral al estrés puede influir también en angiogénesis y microambiente.
64. ATF4 y músculo
En músculo, ATF4 participa en respuesta a ayuno, inmovilización, estrés y envejecimiento; activación crónica puede contribuir a programas catabólicos.
65. ATF4 y sarcopenia
La sarcopenia humana es multifactorial y no debe reducirse a una sola vía, aunque ATF4 pueda contribuir a pérdida muscular en modelos experimentales.
66. PERK y hígado
En hepatocitos, PERK–ATF4 participa en estrés metabólico, aminoácidos, lipogénesis indirecta y redox, interactuando con IRE1 y ATF6 en MASLD.
67. PERK y tejido adiposo
En adipocitos, el estrés del RE puede alterar adipocinas, sensibilidad a insulina e inflamación.
68. PERK y metabolismo energético sistémico
La activación crónica de ISR puede alterar metabolismo sistémico mediante hormonas, factores secretados y cambios tisulares.
69. FGF21
ATF4 puede aumentar FGF21 en determinados contextos, conectando ISR con señal endocrina y metabolismo sistémico.
70. GDF15
La ISR también puede relacionarse con GDF15, señal sistémica asociada a estrés mitocondrial y metabólico.
71. Estrés celular y señales sistémicas
estrés proteotóxico → ATF4 → factores secretados → comunicación entre órganos.
72. ISR y envejecimiento
Con el envejecimiento pueden observarse activación basal mayor o menor capacidad adaptativa según tejido. El problema puede ser pérdida de regulación temporal.
73. Activación basal elevada
Una célula envejecida puede mantener eIF2α parcialmente fosforilada, ATF4 elevado y traducción alterada, reduciendo rango dinámico frente a nuevos desafíos.
74. El concepto de techo adaptativo
Si una respuesta ya está activada en reposo, existe menos margen para incrementarla: reducción del techo adaptativo.
75. PERK y Reserva Proteostática
PERK permite reducir demanda, redistribuir aminoácidos, sostener redox y activar autofagia. Una respuesta flexible aumenta resiliencia; una crónica puede reducirla.
76. PERK y Reserva Metabólica
La reducción de traducción ahorra energía y ATF4 reorganiza metabolismo, conectando Reserva Molecular y Reserva Metabólica.
77. PERK y Reserva Inmunológica
La vía puede modificar NF-κB, citocinas y función inmune.
78. PERK y Reserva Regenerativa
La ISR ayuda a coordinar cambios de síntesis durante quiescencia, activación y diferenciación, pero una activación crónica puede comprometer regeneración.
Integración con los CÓDICES anteriores
- CÓDICE 003: ATF4 conecta programas transcripcionales y metabolismo de cofactores epigenéticos.
- CÓDICE 004: PERK y CHOP pueden contribuir a inflammaging.
- CÓDICE 005: calcio, ATP, ROS y apoptosis conectan RE y mitocondrias.
- CÓDICE 006: ATF4 y NRF2 participan en defensa antioxidante.
- CÓDICE 007: ATF4 puede favorecer genes autofágicos.
- CÓDICE 008: estrés persistente puede favorecer senescencia o apoptosis.
Integración con los Hallmarks del Envejecimiento
La vía se integra con pérdida de proteostasis, nutrient sensing, disfunción mitocondrial, macroautofagia disminuida, alteraciones epigenéticas, senescencia celular, agotamiento de células madre, comunicación intercelular e inflamación crónica.
Integración con el Modelo IXUGEN®
Dentro del Modelo IXUGEN®, PERK–eIF2α–ATF4 representa un mecanismo de ADMINISTRACIÓN DE RECURSOS DURANTE EL ESTRÉS, protegiendo Reserva Molecular, Metabólica, Inmunológica y Regenerativa.
Aplicaciones Clínicas
PERK–eIF2α–ATF4 es objetivo de investigación en neurodegeneración, diabetes, enfermedades metabólicas, cáncer y trastornos de proteínas mal plegadas. Biomarcadores experimentales incluyen PERK fosforilada, eIF2α fosforilada, ATF4, CHOP y GADD34, pero ninguno aislado define estrés del RE sistémico.
Mito
“PERK detiene la síntesis proteica porque la célula está muriendo.”
Realidad
La reducción inicial es una estrategia protectora.
Mito
“Si la traducción global disminuye, todas las proteínas disminuyen.”
Realidad
ATF4 puede traducirse preferentemente durante fosforilación de eIF2α.
Mito
“ATF4 pertenece exclusivamente a la UPR del retículo.”
Realidad
Forma parte de la ISR y puede activarse por PERK, GCN2, PKR o HRI.
Mito
“CHOP significa necesariamente apoptosis.”
Realidad
Indica estrés persistente y puede favorecer apoptosis, pero el destino depende del contexto.
Mito
“Bloquear PERK sería beneficioso porque restauraría la síntesis proteica.”
Realidad
La inhibición indiscriminada puede impedir una respuesta protectora.
Mito
“ISRIB es una terapia de longevidad.”
Realidad
Sigue siendo una herramienta experimental.
PERK representa una estrategia de austeridad molecular. Cuando el retículo se satura, la célula reduce temporalmente la producción para conservar recursos y evitar que la carga aumente. ATF4 reorganiza metabolismo, redox y reciclaje para favorecer recuperación. El problema surge cuando esa austeridad deja de ser temporal: una señal sostenida compromete síntesis, aumenta CHOP y puede convertir una respuesta protectora en pérdida funcional. Resiliencia significa saber frenar, adaptarse y volver a crecer cuando el desafío ha terminado.
- PERK está codificada por EIF2AK3.
- Su principal sustrato es eIF2α.
- La fosforilación de eIF2α reduce rápidamente la traducción global.
- ATF4 puede aumentar a pesar de esta reducción.
- ATF4 coordina aminoácidos, redox, autofagia y metabolismo.
- PERK forma parte de la Integrated Stress Response.
- GCN2, PKR y HRI también fosforilan eIF2α.
- GADD34 ayuda a restaurar traducción mediante desfosforilación de eIF2α.
- CHOP representa estrés persistente y transición maladaptativa.
- CHOP puede aumentar ERO1α y presión oxidativa.
- PERK conecta RE y apoptosis mitocondrial.
- La activación crónica puede comprometer plasticidad neuronal.
- PERK es esencial para la función de células β pancreáticas.
- ISRIB sigue siendo experimental.
- Una ISR fisiológica requiere activación y resolución.
- PERK es uno de los tres sensores principales de UPR.
- Su función inicial consiste en disminuir la carga proteica.
- PERK fosforila eIF2α.
- eIF2α fosforilada reduce la traducción global.
- ATF4 aumenta selectivamente durante este estado.
- ATF4 reorganiza metabolismo, redox y autofagia.
- PERK forma parte de la Integrated Stress Response.
- GCN2, PKR y HRI convergen también sobre eIF2α.
- GADD34 permite recuperar traducción.
- Una recuperación prematura puede volver a aumentar la carga del RE.
- CHOP aumenta especialmente durante estrés persistente.
- CHOP puede conectar estrés del RE, ROS, calcio y apoptosis.
- PERK puede modular inflamación mediante NF-κB.
- La vía es esencial para células secretoras y metabolismo.
- Su activación crónica puede contribuir a neurodegeneración, disfunción metabólica y pérdida de resiliencia.
- La ISR constituye un mecanismo de administración de recursos frente al estrés.
- La salud depende de poder activar y posteriormente resolver esta respuesta.
Introducción
Las dos primeras grandes ramas de la Unfolded Protein Response responden al estrés del retículo endoplásmico mediante estrategias complementarias.
IRE1–XBP1 amplía la capacidad del retículo, aumenta componentes de ERAD y remodela la maquinaria secretora.
PERK–eIF2α–ATF4 reduce temporalmente la traducción y redistribuye recursos hacia adaptación, metabolismo, redox y reciclaje.
La tercera gran rama utiliza una estrategia molecular diferente:
ATF6
ATF6 es una proteína transmembrana localizada inicialmente en el retículo endoplásmico. Cuando aparece estrés, abandona el RE, viaja hacia el aparato de Golgi y allí es procesada proteolíticamente.
La secuencia puede resumirse:
estrés del RE → ATF6 sale del RE → tráfico hacia Golgi → proteólisis regulada → ATF6(N) → núcleo → chaperonas + ERAD + adaptación.
ATF6 constituye un mecanismo extraordinario de comunicación entre organelos. IRE1, PERK y ATF6 funcionan como una red coordinada en la que cada brazo modifica un aspecto distinto del problema proteostático.
El verdadero objetivo de la UPR no es mantener estas vías permanentemente activas. Es resolver el estrés y recuperar la homeostasis.
1. ¿Qué es ATF6?
ATF6 significa Activating Transcription Factor 6. En mamíferos existen ATF6α y ATF6β. La isoforma más estudiada es:
ATF6α
codificada por ATF6.
ATF6 es una proteína transmembrana del RE con dominio luminal, segmento transmembrana y dominio citosólico que, una vez liberado, actúa como factor de transcripción.
2. ATF6 en condiciones basales
En homeostasis, ATF6 permanece predominantemente asociado al RE. BiP/GRP78 participa en su regulación. Cuando aumenta la carga de proteínas desplegadas, cambia la disponibilidad de BiP y la conformación funcional de ATF6, facilitando su tránsito fuera del RE.
3. ATF6 como sensor móvil
A diferencia de IRE1 y PERK, ATF6 utiliza un mecanismo de relocalización:
RE → Golgi.
4. Tráfico mediante COPII
El transporte desde RE hacia Golgi utiliza vesículas recubiertas por COPII. Durante estrés, ATF6 puede incorporarse a esta ruta.
5. Llegada al aparato de Golgi
En el Golgi, ATF6 encuentra proteasas:
- S1P — Site-1 Protease;
- S2P — Site-2 Protease.
6. S1P
S1P realiza un primer corte en una región luminal de ATF6 y prepara el segundo paso.
7. S2P
S2P realiza una proteólisis dentro o cerca del segmento transmembrana, liberando el dominio citosólico N-terminal:
ATF6(N).
8. ATF6(N): el factor de transcripción activo
ATF6(N) se dirige al núcleo y activa genes relacionados con chaperonas, control de calidad, degradación y biogénesis proteostática.
9. Señalización desde un organelo hacia el núcleo
ATF6 demuestra que los organelos pueden detectar su propio estado funcional y comunicarlo al núcleo mediante señalización retrógrada.
10. ATF6 y BiP/GRP78
Uno de los principales genes inducidos por ATF6 es BiP/GRP78:
ATF6 → BiP ↑ → capacidad de chaperonaje ↑.
11. ATF6 y otras chaperonas
ATF6 puede favorecer expresión de proteínas de la familia GRP, foldasas y factores de ERAD.
12. ATF6 y ERAD
ATF6 aumenta genes relacionados con ERAD, combinando más rescate y más eliminación.
13. ATF6 y XBP1
ATF6 puede aumentar la expresión de XBP1, mientras IRE1 procesa su ARN para generar XBP1s:
ATF6 → más XBP1 disponible + IRE1 → splicing de XBP1 = respuesta adaptativa amplificada.
14. Cooperación ATF6–XBP1s
ATF6(N) y XBP1s comparten determinados genes diana y actúan de manera complementaria en chaperonas, ERAD y expansión secretora.
15. Diferencias funcionales entre ATF6 y XBP1
ATF6 participa especialmente en inducción inicial de chaperonas y preparación adaptativa; XBP1s en expansión del RE, biogénesis secretora, ERAD y metabolismo lipídico.
16. Cronología de la UPR
Inmediatamente
PERK → traducción ↓
Posteriormente
IRE1 → XBP1s y ATF6 → ATF6(N)
La secuencia lógica es:
frenar → reorganizar → expandir → recuperar.
17. El retículo como fábrica en crisis
PERK
Reduce la entrada de nuevos productos.
IRE1–XBP1
Amplía las líneas de producción y eliminación.
ATF6
Aumenta personal y maquinaria de control de calidad.
18. Las tres ramas comparten un objetivo
RESTAURAR LA HOMEOSTASIS DEL RETÍCULO ENDOPLÁSMICO.
La UPR es fundamentalmente una respuesta de adaptación.
19. Resolución de la UPR
Cuando disminuye la carga, se recupera plegamiento, ERAD elimina sustratos defectuosos y disminuye señalización de sensores. La célula vuelve progresivamente al estado basal.
20. Resolver no significa volver exactamente al punto inicial
Después de un episodio de estrés, la célula puede conservar más chaperonas, cambios metabólicos y remodelación del RE, generando una memoria funcional adaptativa.
21. Desactivación de IRE1
Cuando disminuye la carga, IRE1 reduce oligomerización, fosforilación y actividad RNasa, limitando XBP1 splicing, RIDD y señalización inflamatoria.
22. Desactivación de PERK
La recuperación reduce actividad de PERK y GADD34–PP1 favorece desfosforilación de eIF2α, restaurando traducción.
23. Reducción de ATF6 activo
ATF6(N) no permanece indefinidamente activo; los programas transcripcionales disminuyen cuando la señal se resuelve.
24. El concepto de proteostasis dinámica
Una respuesta saludable sigue:
homeostasis → desafío → respuesta → adaptación → resolución → recuperación.
La pérdida de resiliencia aparece cuando existe respuesta persistente sin resolución.
25. UPR aguda versus UPR crónica
UPR aguda
Puede disminuir traducción, aumentar chaperonas y ERAD y favorecer supervivencia.
UPR crónica
Puede asociarse con RIDD excesivo, CHOP, JNK, NF-κB, ROS, inflamación y apoptosis.
26. La señal no es binaria
La célula integra intensidad, duración, tipo de estrés, energía, daño mitocondrial, inflamación y estado celular. El destino emerge del balance de múltiples señales.
27. IRE1, PERK y ATF6 interactúan entre sí
ATF6 aumenta XBP1, XBP1 y ATF6 comparten genes de ERAD, PERK reduce traducción mientras otras ramas aumentan capacidad, ATF4 modifica redox y autofagia e IRE1 participa en inflamación.
28. La UPR como balance entre entrada y salida
ENTRADA DE CARGA
síntesis, transporte, demanda secretora.
CAPACIDAD DE SALIDA
plegamiento, ERAD, proteasoma, autofagia.
La UPR intenta restablecer:
entrada ≤ capacidad.
29. PERK controla entrada
PERK reduce nuevas proteínas y actúa sobre demanda inmediata.
30. IRE1 y ATF6 aumentan capacidad
Aumentan chaperonas, ERAD y expansión del RE.
31. Autofagia proporciona una vía adicional
La red completa se convierte en reducir entrada + aumentar procesamiento + aumentar eliminación.
32. ER-phagy y recuperación del RE
La ER-phagy participa en remodelación y eliminación selectiva de regiones del RE tras expansión o daño.
33. La resolución requiere autofagia
Una UPR exitosa debe retirar material dañado, exceso de membranas, agregados y estructuras disfuncionales.
34. UPR y sistema ubiquitina–proteasoma
UPR → ERAD → ubiquitina → proteasoma.
Si el proteasoma está comprometido, el RE puede permanecer bajo estrés.
35. Cuellos de botella
ERAD puede reconocer proteínas pero fracasar si p97 está comprometida, el proteasoma saturado o ATP insuficiente.
36. El proteasoma como determinante de la UPR
degradación proteasomal ↓ → sustratos ERAD ↑ → estrés del RE ↑ → UPR persistente.
37. Lisosomas como determinantes de resolución
Si la autofagia se activa pero los lisosomas degradan mal, los autofagosomas pueden acumularse sin resolver daño.
activar una respuesta no garantiza completarla.
38. ATF6 y estrés oxidativo
ATF6 puede aumentar genes de chaperonas y protección que reducen misfolding asociado al daño oxidativo.
39. ATF6 y NRF2
UPR y NRF2 pueden cooperar frente a daño proteotóxico y oxidativo.
40. ATF6 y metabolismo
El RE produce proteínas, lípidos y membranas; modificar su capacidad implica remodelar metabolismo celular.
41. ATF6 y hígado
En hepatocitos, ATF6 puede ejercer funciones adaptativas frente a estrés metabólico, dentro de una red compleja relacionada con MASLD.
42. ATF6 y metabolismo de lípidos
ATF6 puede modificar programas de lipogénesis, manejo de lípidos y respuesta a estrés de forma contextual.
43. ATF6 y células β
ATF6 contribuye al mantenimiento de chaperonas, plegamiento y homeostasis secretora en células β pancreáticas.
44. Estrés crónico en células β
Hiperglucemia, resistencia a insulina y lipotoxicidad pueden superar la capacidad de las tres ramas, produciendo UPR crónica, pérdida de función, inflamación y muerte celular.
45. ATF6 y sistema cardiovascular
El corazón depende de un proteoma altamente organizado. ATF6 se ha estudiado frente a isquemia, estrés oxidativo y sobrecarga.
46. Isquemia–reperfusión
Durante isquemia disminuye ATP y se altera calcio y redox; en reperfusión aumenta estrés oxidativo. ATF6 puede favorecer respuestas citoprotectoras en modelos experimentales.
47. ATF6 y cerebro
Las neuronas requieren proteínas de membrana, receptores, canales y proteínas sinápticas, todas dependientes de un RE funcional.
48. ATF6 y enfermedades de agregación
La respuesta del RE constituye una parte de una red proteostática más amplia y no la totalidad del problema.
49. ATF6 y glaucoma
Mutaciones en ATF6 y vías de proteostasis del RE se han asociado con ciertos trastornos oculares del desarrollo.
50. ATF6 y enfermedad genética
La alteración de una vía de UPR puede producir consecuencias específicas según tejido, demostrando que los sensores no son completamente redundantes.
51. ATF6 y cáncer
Las células tumorales pueden utilizar ATF6 para sobrevivir frente a hipoxia, estrés metabólico y alta síntesis proteica.
52. La paradoja oncológica de la UPR
En tejidos normales, UPR puede proteger; en células malignas puede favorecer adaptación tumoral.
53. UPR e inmunidad
Las células inmunológicas dependen intensamente del RE para diferenciación, secreción, citocinas y respuesta a infección.
54. UPR e inmunometabolismo
La activación inmunológica cambia síntesis, glucólisis, mitocondrias y secreción; la UPR ayuda a coordinar estas demandas.
55. UPR e inflammaging
Inflammaging puede mantener el RE bajo presión y UPR parcialmente activada; la UPR maladaptativa puede aumentar señales inflamatorias.
56. UPR y senescencia
La célula senescente produce SASP y genera una carga secretora elevada; IRE1, PERK y ATF6 pueden participar en sostener esta infraestructura.
57. SASP como desafío proteostático
La producción crónica de IL-6, IL-8, quimiocinas, factores de crecimiento y proteasas requiere intensa actividad RE → Golgi → secreción.
58. El círculo senescencia–UPR
daño proteico → UPR crónica → senescencia → SASP → mayor síntesis secretora + inflamación → más estrés del RE.
59. UPR y células madre
Las células madre necesitan un control fino de síntesis. Cuando se activan:
síntesis ↑ + RE ↑ + proteostasis ↑.
60. Diferenciación y UPR
Los linajes altamente secretores necesitan expandir especialmente RE, Golgi y chaperonas.
61. Envejecimiento de células madre
Con la edad puede disminuir la capacidad de adaptar el proteoma durante activación, contribuyendo a pérdida regenerativa.
62. UPR y Reserva Regenerativa
La capacidad de cambiar de un proteoma de mantenimiento a uno de proliferación constituye una dimensión de Reserva Regenerativa.
63. ATF6 y envejecimiento
La respuesta ATF6 puede cambiar con la edad de forma dependiente de tejido, sexo, metabolismo y enfermedad, con posible pérdida de capacidad adaptativa y resolución.
64. El envejecimiento como UPR basalmente elevada
Una señal basal persistente puede indicar que el sistema trabaja cerca de su límite, produciendo respuesta menos eficiente y recuperación incompleta ante nuevos desafíos.
65. Menor margen de respuesta
Célula joven
bajo estrés basal + gran capacidad inducible.
Célula envejecida
estrés basal mayor + menor reserva inducible.
66. Reserva de UPR
Puede conceptualizarse una RESERVA UPR: capacidad de detectar sobrecarga, reducir traducción, aumentar chaperonas y ERAD, coordinar autofagia, resolver estrés y recuperar síntesis normal.
67. Resolver versus mantener adaptación crónica
Una célula puede sobrevivir con UPR parcialmente activa, pero con costos de menor síntesis, inflamación, cambios metabólicos y menor función.
68. Adaptación alostática
La UPR crónica puede considerarse un ejemplo molecular de carga alostática.
69. De la homeostasis a la allostasis proteostática
homeostasis → estrés → adaptación temporal → recuperación, pero si persiste: adaptación sostenida → costo metabólico → pérdida funcional.
70. ATF6 y medicina de precisión
La modulación futura de ATF6 podría ser útil en enfermedades específicas, pero dependerá del contexto molecular.
71. Activadores de ATF6
Se han investigado activadores selectivos de ATF6 en modelos preclínicos, incluyendo cardioprotección y enfermedades de agregación.
72. La selectividad como desafío
Una estrategia más precisa podría modular una rama específica o un conjunto específico de genes diana.
73. UPR como objetivo farmacológico
IRE1 RNasa/quinasa, PERK, eIF2α/ISR, ATF6, chaperonas y ERAD son blancos potenciales, pero intervenir sistemas tan centrales exige cautela.
74. Ninguna rama es universalmente buena o mala
IRE1 puede ser adaptativa o inflamatoria; PERK puede proteger o perjudicar si persiste; ATF6 puede aumentar capacidad o favorecer supervivencia de células patológicas.
75. El objetivo no es maximizar UPR
La medicina de longevidad no debería buscar más IRE1, PERK o ATF6, sino:
una UPR suficientemente rápida, proporcional y reversible.
76. La señal ideal
activación rápida → respuesta suficiente → resolución completa → retorno a homeostasis.
Una señal demasiado pequeña no resuelve; demasiado intensa puede dañar; demasiado prolongada se vuelve maladaptativa.
77. Integración con el Modelo IXUGEN®
La UPR conecta Reserva Molecular, Metabólica, Inmunológica, Regenerativa y Funcional.
78. Resiliencia como resolución
capacidad de resolverla.
detectar → responder → compensar → eliminar daño → apagar la respuesta → recuperar función.
Integración con los Hallmarks del Envejecimiento
La UPR se integra con pérdida de proteostasis, macroautofagia disminuida, disfunción mitocondrial, nutrient sensing, alteraciones epigenéticas, senescencia celular, agotamiento de células madre, inflamación crónica y comunicación intercelular alterada.
Aplicaciones Clínicas
La investigación de ATF6 y UPR integrada tiene relevancia potencial en diabetes, MASLD, neurodegeneración, cardiopatía, enfermedades de proteínas mal plegadas, cáncer e inmunología. Ningún marcador aislado define por sí mismo una UPR saludable o patológica.
Mito
“ATF6 funciona igual que IRE1 y PERK.”
Realidad
ATF6 se activa mediante tráfico RE–Golgi y proteólisis regulada.
Mito
“ATF6 se activa y actúa directamente desde el retículo.”
Realidad
Debe viajar al Golgi y ser procesado por S1P y S2P.
Mito
“Las tres ramas de UPR compiten entre sí.”
Realidad
Cooperan intensamente.
Mito
“La UPR termina cuando deja de aumentar la cantidad de proteínas mal plegadas.”
Realidad
La resolución requiere restaurar traducción, eliminar daño y recuperar equilibrio metabólico.
Mito
“Una UPR permanentemente activa sería protectora.”
Realidad
La activación crónica puede generar inflamación, alteración metabólica, pérdida de función y apoptosis.
Mito
“Activar ATF6 podría utilizarse actualmente como estrategia general de longevidad.”
Realidad
La modulación selectiva continúa principalmente en investigación.
La UPR no es un programa destinado a mantener a la célula permanentemente en modo de defensa. Es una secuencia temporal diseñada para reducir la carga, aumentar capacidad, eliminar daño y regresar a la función normal. ATF6 completa esta lógica aumentando chaperonas y cooperando con IRE1–XBP1, mientras PERK compra tiempo reduciendo la traducción. La verdadera Resiliencia Proteostática se mide conceptualmente no por cuán intensa puede ser la respuesta, sino por cuán eficazmente puede resolver el problema y apagarse después.
- ATF6 es un sensor transmembrana del RE.
- Su activación requiere tráfico hacia el aparato de Golgi.
- S1P y S2P liberan el fragmento activo ATF6(N).
- ATF6(N) actúa como factor de transcripción.
- ATF6 aumenta BiP y otras proteínas de control de calidad.
- ATF6 favorece componentes de ERAD.
- ATF6 puede aumentar la expresión de XBP1.
- IRE1, PERK y ATF6 funcionan de manera coordinada.
- PERK reduce carga; IRE1 y ATF6 amplían capacidad.
- La autofagia contribuye a la resolución final del estrés.
- La UPR aguda y la UPR crónica poseen consecuencias distintas.
- La desactivación de los sensores es una parte activa de la recuperación.
- Una UPR crónica puede representar adaptación incompleta.
- La UPR puede proteger células normales y favorecer supervivencia tumoral.
- La capacidad de resolución constituye una dimensión de Resiliencia Biológica.
- ATF6 constituye la tercera gran rama de la UPR.
- Se activa mediante relocalización desde RE hacia Golgi.
- S1P y S2P realizan su procesamiento proteolítico.
- ATF6(N) se dirige al núcleo.
- ATF6 aumenta chaperonas y componentes de ERAD.
- ATF6 coopera estrechamente con IRE1–XBP1.
- Las tres ramas de UPR poseen funciones complementarias.
- PERK reduce rápidamente la entrada de nueva carga.
- IRE1–XBP1 y ATF6 aumentan capacidad de plegamiento y eliminación.
- Autofagia y proteasoma son necesarios para completar la resolución.
- La UPR debe activarse y posteriormente apagarse.
- La UPR crónica puede convertirse en maladaptativa.
- El envejecimiento puede reducir el margen entre demanda y capacidad del RE.
- Una respuesta basal persistentemente elevada puede disminuir el rango adaptativo.
- El concepto clave para gerociencia no es máxima activación de UPR, sino respuesta proporcional y reversible.
- La resolución del estrés constituye una expresión fundamental de la Reserva Proteostática.
- La capacidad de regresar a homeostasis constituye una expresión directa de la Resiliencia Biológica.
Introducción
El retículo endoplásmico constituye uno de los principales centros de control de calidad del proteoma secretado y de membrana. Su función depende de mantener un delicado equilibrio entre la cantidad de proteínas que ingresan, la capacidad para plegarlas correctamente, la eficiencia para eliminar aquellas que no pueden recuperarse y la disponibilidad energética necesaria para sostener todo el proceso.
Cuando la demanda supera temporalmente esa capacidad, la célula activa la Unfolded Protein Response — UPR.
Las partes anteriores mostraron que esta respuesta se organiza alrededor de tres grandes sensores: IRE1, PERK y ATF6.
IRE1–XBP1 aumenta la capacidad de plegamiento, ERAD y expansión del RE.
PERK–eIF2α–ATF4 reduce temporalmente la traducción y redistribuye recursos.
ATF6 aumenta chaperonas y componentes de control de calidad mediante tráfico RE–Golgi.
Estas tres ramas convergen sobre:
RECUPERAR LA HOMEOSTASIS.
La clave biológica es si la célula logra:
detectar → responder → compensar → eliminar daño → apagar la respuesta → recuperar función.
Cuando este ciclo se completa, la UPR representa resiliencia. Cuando no puede resolverse, la misma maquinaria comienza a asociarse con inflamación, alteraciones metabólicas, estrés oxidativo, senescencia, apoptosis y pérdida de función tisular.
1. La UPR como sistema de equilibrio entre demanda y capacidad
El problema fundamental del RE puede reducirse a:
Demanda proteica versus Capacidad proteostática del RE.
En homeostasis: demanda ≤ capacidad.
Durante un desafío agudo: demanda > capacidad basal, pero UPR → capacidad adaptativa ↑.
Si la expansión compensa la carga: homeostasis restaurada. Si no: estrés persistente.
2. La UPR es inicialmente protectora
Busca disminuir temporalmente traducción, aumentar chaperonas, incrementar ERAD, expandir el RE, activar autofagia y reorganizar metabolismo.
3. Adaptación exitosa
estrés → IRE1 + PERK + ATF6 → carga ↓ / capacidad ↑ → proteínas defectuosas eliminadas → sensores se desactivan → traducción se normaliza → HOMEOSTASIS.
4. Resolución incompleta
La célula puede sobrevivir sin recuperar completamente el estado previo: UPR parcialmente activa, metabolismo reorganizado, síntesis alterada e inflamación aumentada. Es una adaptación crónica con costo funcional.
5. Estrés del RE crónico
Inflamación, hiperglucemia, lipotoxicidad, hipoxia, mutaciones, daño oxidativo y envejecimiento pueden mantener la UPR activada durante periodos prolongados.
6. De la adaptación a la maladaptación
Fase adaptativa
IRE1–XBP1 → plegamiento y ERAD ↑
PERK–eIF2α → traducción ↓
ATF6 → chaperonas ↑
Fase maladaptativa
RIDD excesivo + JNK ↑ + NF-κB ↑ + CHOP ↑ + ROS ↑ + Ca²⁺ alterado → disfunción / senescencia / apoptosis.
7. El papel del tiempo
La misma señal puede ser protectora durante horas y perjudicial si permanece activa durante días o semanas. La cronología es fundamental.
8. Inflamación y estrés del RE
El estrés del RE puede activar inflamación mediante IRE1–TRAF2–JNK, NF-κB, PERK, ROS y CHOP.
9. Inflamación como causa de estrés del RE
Citocinas inflamatorias aumentan síntesis, estrés oxidativo, alteraciones de calcio y demanda metabólica:
inflamación → estrés del RE → UPR → inflamación.
10. Inflammaging
Durante el envejecimiento, inflammaging aumenta la presión basal sobre el RE y reduce el margen proteostático.
11. Menor margen frente a nuevos desafíos
Una célula sometida a estrés basal crónico dispone de menos reserva frente a infección, ejercicio intenso, hipoxia o sobrecarga nutricional.
12. UPR y metabolismo de glucosa
El estrés del RE interactúa con señalización de insulina mediante JNK, inflamación, cambios de traducción y metabolismo.
13. Resistencia a la insulina
La resistencia a insulina aumenta demanda sobre células β, hígado y tejido adiposo. La hiperinsulinemia compensatoria obliga a aumentar síntesis de insulina y eleva carga del RE.
14. Célula β y agotamiento secretor
demanda ↑ → UPR adaptativa ↑.
Si la resistencia a insulina persiste:
síntesis crónicamente elevada → estrés persistente → menor capacidad secretora + inflamación + muerte de células β.
15. Diabetes tipo 2
No es una enfermedad de UPR, sino un trastorno multifactorial. La proteostasis del RE participa en compensación inicial, deterioro progresivo y vulnerabilidad de células β.
16. Hígado y MASLD
En MASLD confluyen exceso de lípidos, resistencia a insulina, inflamación, estrés oxidativo y estrés del RE.
17. Lipotoxicidad
El exceso de determinados lípidos altera membranas del RE, calcio, redox y plegamiento.
18. UPR hepática y progresión
En fases tempranas puede existir adaptación; en fases avanzadas, respuesta persistente puede contribuir a inflamación, apoptosis y fibrosis.
19. UPR y sistema nervioso
Las neuronas requieren proteostasis durante décadas para canales, receptores, proteínas sinápticas, proteínas de membrana y transporte.
20. Alzheimer
Se han descrito señales relacionadas con estrés del RE, PERK, eIF2α e IRE1, interactuando con β-amiloide, tau, mitocondrias, inflamación y autofagia.
21. Parkinson
La agregación de α-sinucleína, disfunción mitocondrial y estrés proteostático pueden converger sobre UPR.
22. TDP-43 y ELA
En ELA y otros trastornos asociados a TDP-43, misfolding, transporte intracelular, UPR y autofagia forman una red compleja.
23. El peligro de inhibir globalmente la UPR en neurodegeneración
Bloquear una vía adaptativa demasiado pronto podría aumentar misfolding. El desafío es identificar cuándo una rama ha pasado de protectora a maladaptativa.
24. Músculo esquelético
Durante ejercicio se produce tensión mecánica, aumento de síntesis, cambios de calcio, ROS y demanda energética; una UPR aguda puede participar en adaptación.
25. Ejercicio y UPR fisiológica
La activación transitoria de BiP, PERK, IRE1 y otros componentes puede reflejar remodelación, con recuperación posterior.
26. Estrés crónico e inactividad
Envejecimiento, enfermedad metabólica e inactividad pueden producir una respuesta menos flexible y basalmente alterada.
27. Sarcopenia
Implica menor síntesis, resistencia anabólica, inflamación, mitocondrias, denervación y proteólisis. La UPR puede contribuir, pero no es causa única.
28. ATF4 y catabolismo muscular
Una activación crónica de ATF4 puede favorecer programas relacionados con pérdida muscular en determinados modelos.
29. Corazón
La proteostasis cardíaca depende de RE, proteasoma, autofagia y mitocondrias.
30. Isquemia y UPR
Durante isquemia disminuyen oxígeno y ATP y se altera calcio, redox y plegamiento. La UPR puede reducir demanda y favorecer supervivencia inicialmente.
31. Reperfusión
El retorno del flujo puede aumentar ROS, calcio y estrés; la relación entre UPR y daño de reperfusión continúa en investigación.
32. UPR e insuficiencia cardíaca
En remodelado cardíaco crónico pueden aparecer señales persistentes de estrés del RE, compensatorias o maladaptativas según fase.
33. Sistema inmunológico
Un plasmocito produce grandes cantidades de anticuerpos; un macrófago activado modifica metabolismo, citocinas y síntesis. La UPR sostiene estas transiciones.
34. Inmunosenescencia
Con la edad disminuye la precisión de respuestas inmunes y una proteostasis deteriorada puede contribuir a menor activación, mayor estrés basal e inflamación crónica.
35. Plasmocitos y envejecimiento
La capacidad de sostener elevada producción de inmunoglobulinas depende de un RE funcional.
36. Macrófagos y UPR
IRE1–XBP1 y PERK–ATF4 modifican polarización, metabolismo y citocinas.
37. Senescencia celular
La UPR puede participar en establecimiento o mantenimiento de senescencia frente a estrés persistente.
38. SASP
Las células senescentes secretan citocinas, quimiocinas, proteasas y factores de crecimiento, imponiendo elevada demanda a RE → Golgi → secreción.
39. SASP y proteostasis del RE
La célula senescente ha perdido parte de su función proliferativa, pero puede mantener intensa actividad secretora que requiere una red proteostática robusta.
40. Circuito UPR–senescencia–SASP
estrés proteotóxico → UPR crónica → senescencia → SASP → inflamación + carga secretora → nuevo estrés del RE.
41. Células madre
Las células madre necesitan una UPR flexible para pasar de quiescencia a activación, proliferación y diferenciación.
42. Agotamiento de células madre
Con el envejecimiento puede disminuir la capacidad de realizar estas transiciones, favoreciendo estrés, senescencia y pérdida de autorrenovación.
43. Regeneración
La reparación tisular exige aumento temporal de síntesis, secreción y remodelación. Un RE funcional permite soportar esta demanda.
44. UPR y cáncer
Las células tumorales pueden utilizar UPR para sobrevivir a ambientes adversos mediante reducción de demanda, aumento de chaperonas, adaptación metabólica y antioxidantes.
45. La paradoja terapéutica
En una célula normal, potenciar ciertas respuestas puede proteger; en una célula tumoral puede favorecer resistencia. Toda intervención debe ser específica y contextual.
46. UPR y resistencia farmacológica
Algunas células malignas utilizan UPR para tolerar quimioterapia, hipoxia y escasez de nutrientes.
47. UPR como biomarcador
En investigación se utilizan BiP/GRP78, XBP1s, IRE1 fosforilada, PERK fosforilada, eIF2α-P, ATF4, CHOP y ATF6(N), pero ninguno refleja por sí solo la totalidad de la UPR.
48. El problema de las biopsias
El estrés del RE es muy dependiente del tejido; una muestra sanguínea no necesariamente refleja cerebro, músculo, hígado o tejido adiposo.
49. Biomarcadores dinámicos
Idealmente habría que valorar antes del desafío → durante respuesta → después de recuperación, pero esto todavía no forma parte de práctica habitual.
50. La UPR y la edad biológica
No existe un “reloj UPR” clínicamente validado, aunque la capacidad de resolver estrés puede contribuir conceptualmente a diferencias entre edad cronológica y funcional.
51. Reserva UPR y Resiliencia
Puede definirse conceptualmente la Reserva UPR como capacidad para reconocer estrés, reducir demanda, aumentar plegamiento, aumentar degradación, coordinar metabolismo y recuperar homeostasis.
52. El envejecimiento reduce el rango dinámico
Con la edad puede ocurrir estrés basal ↑ y capacidad inducible ↓, estrechando el rango dinámico.
53. Homeostenosis
La pérdida de Reserva UPR constituye un ejemplo molecular de homeostenosis, la reducción progresiva de la capacidad de mantener homeostasis frente a desafíos.
54. De homeostenosis a fragilidad
Cuando disminuyen simultáneamente reservas molecular, metabólica, inmunológica y regenerativa, pequeños desafíos producen consecuencias mayores.
55. Integración de toda la UPR
ESTRÉS DEL RE
IRE1
XBP1s → chaperonas + ERAD + expansión
RIDD / JNK → inflamación si persiste
PERK
eIF2α-P → traducción ↓
ATF4 → metabolismo / redox / autofagia
CHOP → maladaptación si persiste
ATF6
Golgi → ATF6(N) → BiP + chaperonas + ERAD
↓
RESOLUCIÓN
o
ESTRÉS CRÓNICO.
56. Integración con ubiquitina–proteasoma
Las proteínas irrecuperables son transferidas mediante ERAD hacia UPS; la UPR depende de que el proteasoma tenga capacidad suficiente.
57. Integración con autofagia
Cuando la carga es grande o existen estructuras complejas, la autofagia participa en degradación, ER-phagy y remodelación.
58. Integración con mitocondrias
RE y mitocondrias comparten calcio, lípidos, energía y señales de muerte.
59. Integración con homeostasis redox
El plegamiento oxidativo produce y utiliza señales redox; NRF2, ATF4 y otros programas ayudan a mantener equilibrio.
60. Integración con epigenética
La capacidad de activar genes UPR depende de accesibilidad cromatínica, factores de transcripción y metabolismo de cofactores.
61. Integración con inflammaging
La inflamación aumenta estrés del RE y la UPR crónica puede aumentar inflamación.
62. Integración con senescencia
La UPR crónica puede favorecer senescencia y el SASP aumenta carga secretora.
63. Integración con agotamiento regenerativo
Las células madre dependen de una proteostasis flexible; la pérdida de capacidad UPR reduce su capacidad para cambiar de estado y reparar tejidos.
64. Aplicaciones Clínicas actuales
En práctica clínica, el estrés del RE no es un diagnóstico independiente ni posee una prueba de rutina universal. Su importancia actual es principalmente:
fisiopatológica y traslacional.
65. Lo que sí puede evaluarse clínicamente
Pueden evaluarse obesidad, glucosa, resistencia a insulina, triglicéridos, MASLD, inflamación, composición corporal, sueño y actividad física.
66. Intervenciones con evidencia más sólida
Ejercicio, control metabólico, mantenimiento de masa muscular, alimentación adecuada, sueño, reducción de obesidad visceral y tratamiento de enfermedades crónicas reducen múltiples fuentes de estrés.
67. Intervenciones experimentales
Se investigan inhibidores de IRE1, moduladores de PERK, moduladores de ISR, activadores selectivos de ATF6, chaperonas farmacológicas y moduladores de ERAD.
68. Chaperonas químicas
Determinados compuestos pueden favorecer estabilidad proteica o reducir estrés del RE en modelos experimentales, pero no deben presentarse como terapias generales de longevidad.
69. TUDCA
El ácido tauroursodesoxicólico se ha estudiado en estrés del RE y enfermedades metabólicas. No existe evidencia suficiente para afirmar que restaura la proteostasis o retrasa el envejecimiento sistémico.
70. 4-PBA
El 4-fenilbutirato tiene usos clínicos establecidos en enfermedades concretas y también se estudia como modulador de estrés del RE; sus efectos no deben extrapolarse a longevidad general.
71. El riesgo de traducir mecanismos directamente a tratamientos
Que una molécula reduzca CHOP, aumente BiP o modifique XBP1 en un modelo experimental no demuestra mayor longevidad humana, prevención de enfermedad o utilidad clínica general.
Integración definitiva con los Hallmarks del Envejecimiento
La UPR se conecta con pérdida de proteostasis, inestabilidad genómica, alteraciones epigenéticas, nutrient sensing, disfunción mitocondrial, macroautofagia disminuida, senescencia celular, agotamiento de células madre, comunicación intercelular alterada, inflamación crónica y disbiosis.
Integración definitiva con el Modelo IXUGEN®
Dentro del Modelo IXUGEN® de Longevidad Saludable, el retículo endoplásmico forma parte de la:
RESERVA MOLECULAR.
La UPR conecta esta reserva con Reserva Metabólica, Inmunológica, Regenerativa y Funcional.
El principio central es:
RESILIENCIA = CAPACIDAD DE RESOLUCIÓN.
No basta con detectar el daño ni activar defensas; la célula debe recuperar la función.
Mito
“La UPR indica que la célula está fallando.”
Realidad
Su activación inicial representa adaptación destinada a restaurar homeostasis.
Mito
“IRE1, PERK y ATF6 funcionan de manera independiente.”
Realidad
Son ramas complementarias y profundamente interconectadas.
Mito
“Más UPR significa más protección.”
Realidad
La activación excesiva o persistente puede convertirse en maladaptativa.
Mito
“CHOP demuestra que la célula necesariamente entrará en apoptosis.”
Realidad
CHOP se asocia con estrés persistente, pero el destino depende de la red completa.
Mito
“El estrés del RE solo importa en enfermedades raras por proteínas mal plegadas.”
Realidad
Participa en metabolismo, neurobiología, inflamación, inmunidad y envejecimiento sistémico.
Mito
“Puede medirse el estrés del RE con un análisis sanguíneo único.”
Realidad
Actualmente no existe un biomarcador clínico único validado para UPR sistémica.
Mito
“Activar ATF6 o XBP1 es una estrategia de rejuvenecimiento.”
Realidad
La modulación continúa siendo principalmente experimental y dependiente del tejido y enfermedad.
La UPR revela que la salud celular depende menos de evitar completamente el estrés que de conservar la capacidad para resolverlo. IRE1 amplía capacidad, PERK compra tiempo y ATF6 refuerza el control de calidad. Cuando estos mecanismos actúan de forma proporcional y se apagan después de cumplir su función, generan resiliencia. Cuando permanecen crónicamente activos, la adaptación se convierte en carga biológica. El envejecimiento puede entenderse, en parte, como la progresiva dificultad para completar el trayecto desde el estrés hasta la recuperación.
- La UPR es inicialmente protectora.
- IRE1, PERK y ATF6 responden a dimensiones diferentes del mismo problema.
- La duración de la respuesta modifica su significado biológico.
- La resolución es tan importante como la activación.
- El estrés crónico del RE puede contribuir a inflammaging.
- La resistencia a insulina aumenta la demanda secretora de células β.
- MASLD integra lipotoxicidad, inflamación y estrés del RE.
- La UPR crónica puede comprometer síntesis neuronal y plasticidad.
- El ejercicio puede inducir una UPR transitoria adaptativa.
- El SASP representa una carga secretora importante para células senescentes.
- ERAD conecta directamente UPR y proteasoma.
- Autofagia y ER-phagy ayudan a completar la recuperación.
- El estrés del RE no puede evaluarse clínicamente con un marcador aislado.
- Los moduladores farmacológicos de UPR siguen siendo principalmente específicos de investigación y enfermedad.
- La capacidad de recuperar homeostasis constituye el concepto más relevante para longevidad saludable.
- El RE es uno de los principales centros de plegamiento y control de calidad de proteínas secretadas y de membrana.
- El estrés del RE aparece cuando la demanda supera la capacidad de procesamiento.
- La UPR constituye la respuesta adaptativa principal frente a esta sobrecarga.
- IRE1–XBP1 amplía plegamiento, ERAD y capacidad secretora.
- PERK–eIF2α reduce rápidamente la traducción.
- ATF4 reorganiza metabolismo, redox y autofagia.
- CHOP aumenta especialmente durante estrés persistente.
- ATF6 aumenta chaperonas y ERAD mediante tráfico RE–Golgi.
- Las tres ramas cooperan para restaurar homeostasis.
- ERAD conecta el RE con ubiquitina y proteasoma.
- Autofagia y ER-phagy contribuyen a resolver cargas complejas.
- La UPR aguda y crónica poseen consecuencias biológicas diferentes.
- Inflamación y estrés del RE pueden amplificarse mutuamente.
- La UPR participa en metabolismo, neurobiología, inmunidad y regeneración.
- La activación persistente puede favorecer senescencia o apoptosis.
- El envejecimiento puede aumentar estrés basal y disminuir capacidad inducible.
- La Reserva UPR representa conceptualmente la capacidad para responder y recuperar.
- La resolución de la UPR constituye una expresión molecular de Resiliencia Biológica.
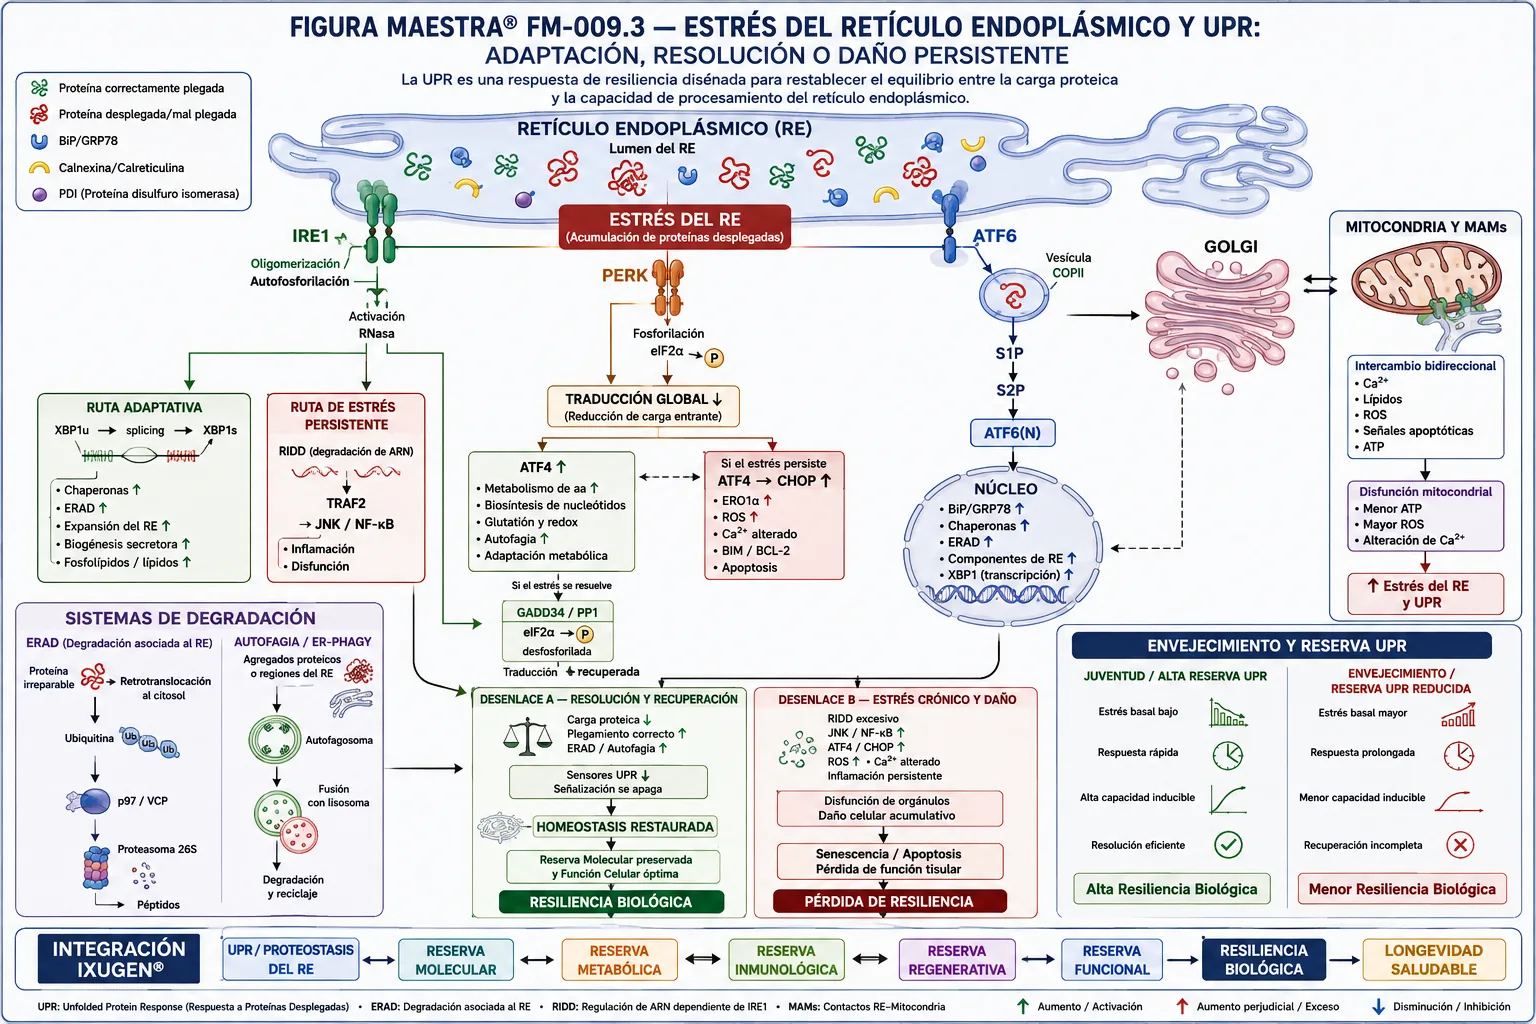
Bibliografía seleccionada del Capítulo III
UPR y estrés del retículo endoplásmico
- Ron D, Walter P. Revisiones fundamentales sobre la Unfolded Protein Response.
- Hetz C, Papa FR. Revisiones sobre UPR, proteostasis y enfermedad.
- Walter P, Ron D. Trabajos conceptuales sobre estrés del RE y adaptación.
- Karagöz GE, Acosta-Alvear D, Walter P. Revisiones sobre sensores UPR.
IRE1–XBP1
- Cox JS, Walter P. Trabajos fundacionales sobre IRE1.
- Yoshida H, et al. Estudios fundamentales sobre XBP1.
- Calfon M, et al. Caracterización del splicing de XBP1.
- Hetz C, et al. Revisiones sobre IRE1 y enfermedad.
- Hollien J, Weissman JS. Trabajos fundamentales sobre RIDD.
PERK–eIF2α–ATF4
- Harding HP, Ron D, et al. Trabajos fundamentales sobre PERK.
- Pakos-Zebrucka K, et al. Revisiones sobre Integrated Stress Response.
- Costa-Mattioli M, Walter P. Revisiones sobre ISR, traducción y enfermedad.
- Wek RC. Estudios y revisiones sobre eIF2α y ATF4.
CHOP y apoptosis
- Zinszner H, et al. Estudios fundamentales sobre CHOP.
- Marciniak SJ, et al. Trabajos sobre CHOP y estrés oxidativo.
- Oyadomari S, Mori M. Revisiones sobre muerte celular inducida por estrés del RE.
ATF6
- Haze K, et al. Trabajos fundacionales sobre ATF6.
- Ye J, et al. Estudios sobre procesamiento S1P/S2P.
- Shoulders MD, et al. Trabajos sobre modulación selectiva de ATF6 y proteostasis.
- Glembotski CC. Revisiones sobre ATF6 y estrés cardiovascular.
ERAD
- Olzmann JA, Kopito RR, Christianson JC. Revisiones sobre ERAD.
- Wu X, Rapoport TA. Revisiones mecanísticas de retrotranslocación.
- Christianson JC, Ye Y. Estudios sobre control de calidad del RE.
UPR y metabolismo
- Hotamisligil GS. Revisiones sobre estrés del RE y enfermedad metabólica.
- Ozcan U, et al. Estudios fundamentales sobre estrés del RE y obesidad.
- Fu S, Watkins SM, Hotamisligil GS. Revisiones sobre estrés del RE y metabolismo.
UPR y envejecimiento
- Martínez G, Duran-Aniotz C, Cabral-Miranda F, Vivar JP, Hetz C. Revisiones sobre UPR y envejecimiento.
- Taylor RC, Dillin A. Trabajos sobre proteostasis y respuestas de estrés durante envejecimiento.
Revistas prioritarias para actualización
- Nature
- Cell
- Science
- Nature Aging
- Nature Reviews Molecular Cell Biology
- Nature Reviews Endocrinology
- Molecular Cell
- Cell Metabolism
- EMBO Journal
- Aging Cell
Conclusión del Capítulo III
El retículo endoplásmico constituye uno de los principales centros donde la información genética se convierte en proteínas funcionales destinadas a la membrana celular, los lisosomas, la secreción y la comunicación intercelular.
Cuando la demanda supera la capacidad de plegamiento y control de calidad, aparece estrés del RE y se activa la Unfolded Protein Response.
IRE1, PERK y ATF6 representan tres estrategias complementarias. IRE1–XBP1 aumenta capacidad. PERK reduce temporalmente la entrada de nuevas proteínas y redistribuye recursos. ATF6 aumenta chaperonas y control de calidad.
Juntas coordinan:
síntesis → plegamiento → ERAD → proteasoma → autofagia → metabolismo.
La finalidad inicial es siempre recuperar homeostasis. Cuando la carga persiste, IRE1 puede aumentar RIDD y JNK, PERK puede mantener ATF4 y CHOP, y la interacción con mitocondrias puede amplificar ROS, alteraciones de calcio y apoptosis. Paralelamente puede aumentar inflamación y favorecer senescencia.
El envejecimiento puede combinar:
mayor presión proteotóxica
y
menor capacidad de resolución.
Desde la perspectiva del Modelo IXUGEN®, esta reserva forma parte de la Reserva Molecular, pero depende estrechamente de las Reservas Metabólica, Inmunológica y Regenerativa.
El principio final del capítulo puede resumirse así:
LA UPR NO ES EL PROBLEMA.
EL PROBLEMA ES PERDER LA CAPACIDAD DE RESOLVERLA.
La célula verdaderamente resiliente no es aquella que nunca experimenta estrés del retículo. Es aquella capaz de detectarlo, responder de forma proporcional, eliminar la carga y regresar a la homeostasis.
Contenido educativo de la Biblioteca Científica AETERNUM® de IXUGEN®. No sustituye la valoración médica individual ni debe utilizarse para autodiagnóstico o tratamiento.