Índice del capítulo ▾
Introducción
Cada célula humana contiene una extraordinaria maquinaria molecular capaz de transformar información genética en estructuras funcionales. Entre los principales productos de esta maquinaria se encuentran las proteínas, moléculas responsables de ejecutar una proporción enorme de las funciones que permiten la vida.
Las proteínas forman parte de prácticamente todos los procesos celulares. Construyen el citoesqueleto, generan fuerza muscular, transportan moléculas, catalizan reacciones metabólicas, reconocen señales, transmiten información, forman canales y receptores de membrana, participan en la respuesta inmunológica, reparan el ADN y regulan la expresión génica.
Sin embargo, producir una proteína no garantiza que esta sea funcional.
Para desempeñar correctamente su función, una proteína debe ser sintetizada con la secuencia adecuada, adquirir una conformación tridimensional apropiada, localizarse en el compartimento celular correcto, interactuar con las moléculas correspondientes y conservar suficiente estabilidad durante el tiempo necesario.
Después deberá ser retirada cuando se encuentre dañada, resulte innecesaria o haya alcanzado el final de su vida útil.
Por tanto, la célula enfrenta continuamente un problema fundamental: no basta con producir proteínas; es necesario preservar la calidad del proteoma.
La solución biológica a este problema recibe el nombre de proteostasis.
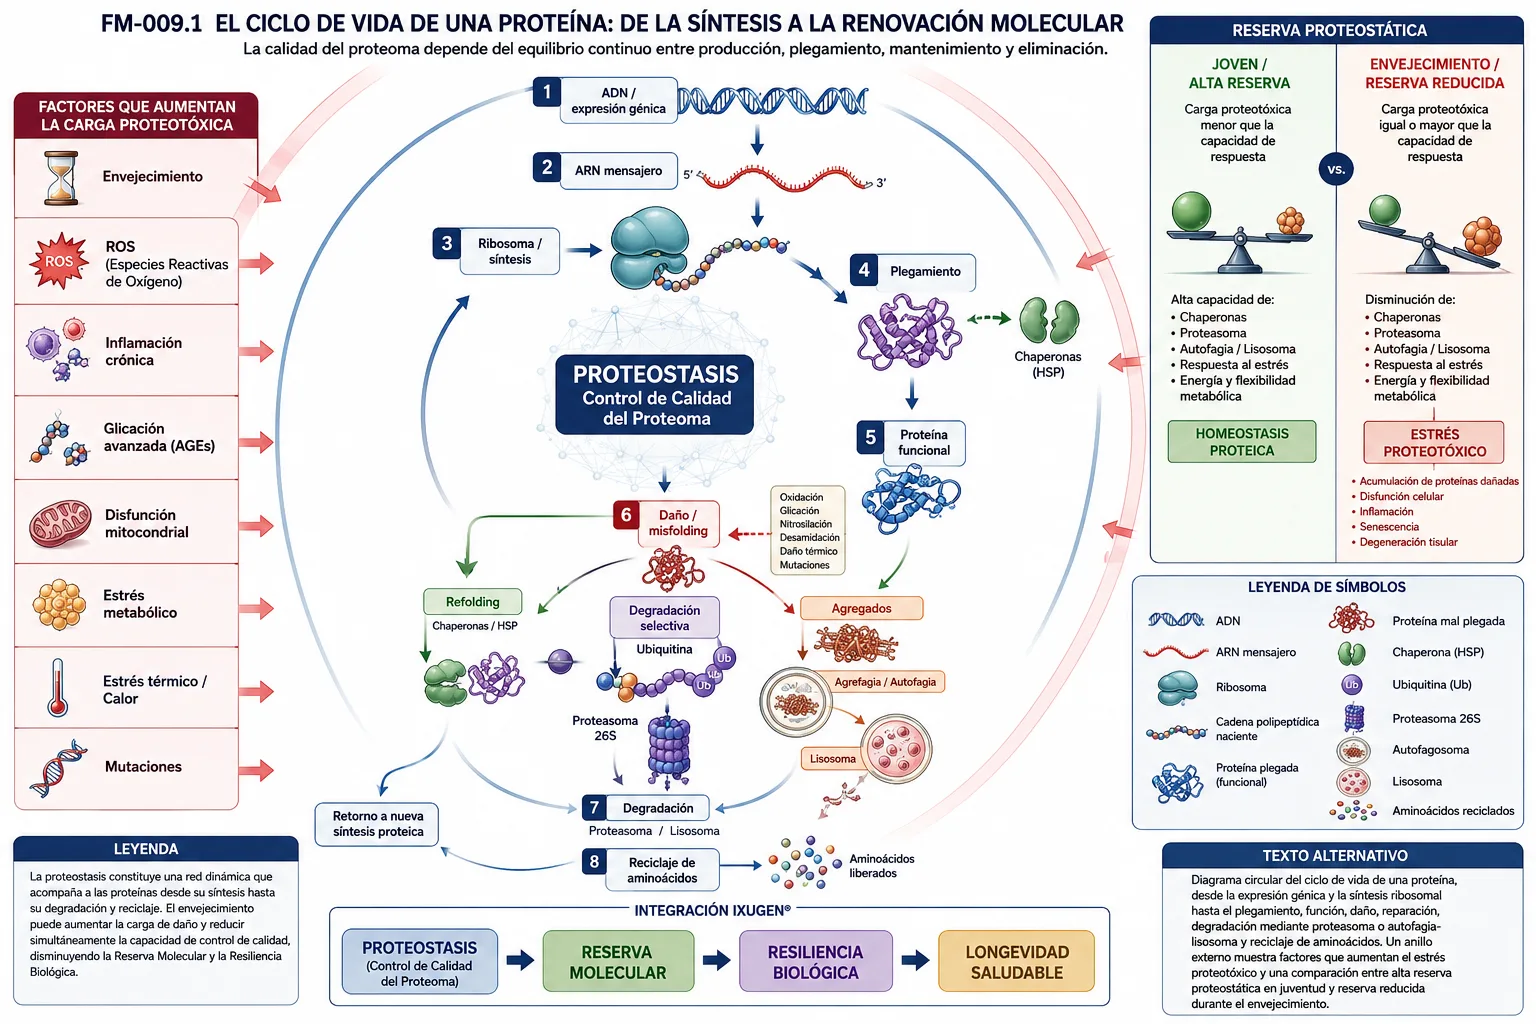
La proteostasis -contracción de protein homeostasis- comprende la red de mecanismos responsables de controlar la síntesis, plegamiento, tráfico, mantenimiento, reparación, vigilancia, degradación y reciclaje de las proteínas.
Esta red constituye uno de los sistemas fundamentales de mantenimiento celular.
Cuando funciona adecuadamente, las células pueden tolerar errores moleculares, adaptarse al estrés y renovar continuamente sus componentes.
Cuando su capacidad comienza a disminuir, aumenta la probabilidad de que aparezcan proteínas dañadas, desplegadas o mal plegadas, algunas de las cuales pueden interactuar de manera anómala y formar oligómeros o agregados.
La pérdida de proteostasis constituye por ello uno de los Hallmarks fundamentales del envejecimiento.
Pero para comprender por qué ocurre es necesario comenzar por una pregunta aparentemente sencilla: ¿qué es realmente una proteína?
1. De la información genética a la función biológica
El ADN almacena información. Las proteínas ejecutan gran parte de esa información.
Esta distinción es esencial.
Un gen contiene una secuencia de nucleótidos capaz de codificar un producto funcional. En el caso de los genes codificantes de proteínas, esa información puede transcribirse inicialmente hacia ARN mensajero y posteriormente traducirse en una secuencia de aminoácidos.
De manera simplificada: ADN -> ARN -> proteína.
Sin embargo, esta representación describe solamente una parte del proceso.
Entre la información genética y una proteína completamente funcional existen múltiples niveles de regulación y control.
La expresión génica depende de:
- accesibilidad de la cromatina;
- regulación epigenética;
- factores de transcripción;
- procesamiento del ARN;
- splicing alternativo;
- estabilidad del ARN mensajero;
- eficiencia de traducción;
- modificaciones postraduccionales;
- plegamiento;
- transporte intracelular;
- degradación.
Por ello, conocer el genoma de una célula no permite conocer automáticamente su estado funcional.
Dos células pueden poseer prácticamente el mismo ADN y, sin embargo, presentar proteomas profundamente diferentes.
Una neurona, un hepatocito, un cardiomiocito y una célula muscular comparten esencialmente el mismo genoma, pero expresan combinaciones distintas de proteínas y mantienen sistemas proteostáticos adaptados a necesidades fisiológicas diferentes.
Esta diversidad constituye una de las bases de la especialización celular.
2. ¿Qué es el proteoma?
El término proteoma describe el conjunto de proteínas expresadas por una célula, tejido, órgano u organismo en determinadas condiciones biológicas.
Pero existe una diferencia fundamental entre genoma y proteoma.
El genoma es relativamente estable. El proteoma es extraordinariamente dinámico.
Puede cambiar en respuesta a:
- edad;
- alimentación;
- actividad física;
- sueño;
- hormonas;
- infecciones;
- inflamación;
- disponibilidad energética;
- estrés oxidativo;
- temperatura;
- fármacos;
- enfermedad;
- exposición ambiental.
Incluso dentro de una misma célula, determinadas proteínas pueden existir durante minutos mientras otras permanecen durante días, meses o periodos todavía mayores.
Por ello, el proteoma debe entenderse como un ecosistema molecular dinámico, no como un inventario estático.
3. El proteoma es mucho más complejo que el número de genes
El organismo humano contiene alrededor de veinte mil genes codificantes de proteínas, pero la diversidad proteica resultante es mucho mayor.
Esto ocurre porque un mismo gen puede originar diferentes productos mediante procesos como:
- splicing alternativo;
- procesamiento proteolítico;
- fosforilación;
- acetilación;
- metilación;
- ubiquitinación;
- glicosilación;
- lipidación;
- formación de complejos proteicos.
Estas modificaciones pueden cambiar actividad, estabilidad, localización, interacciones, vida media y destino final de una proteína.
Por tanto, la biología celular no depende únicamente de qué proteínas existen, sino también de en qué estado se encuentran.
Principio central: la función del proteoma depende tanto de su composición como de su calidad.
4. Síntesis de proteínas
La producción de proteínas ocurre principalmente mediante la traducción del ARN mensajero en los ribosomas.
Los ribosomas interpretan la secuencia de nucleótidos y ensamblan aminoácidos siguiendo el código genético.
Cada aminoácido se incorpora progresivamente a una cadena creciente denominada cadena polipeptídica.
Pero esta cadena recién sintetizada todavía no representa necesariamente una proteína funcional.
Debe adquirir una organización espacial específica. Aquí comienza uno de los procesos más extraordinarios de la biología molecular: el plegamiento proteico.
5. La secuencia determina posibilidades estructurales
Las proteínas están constituidas por cadenas de aminoácidos unidos mediante enlaces peptídicos.
La secuencia específica de aminoácidos recibe el nombre de estructura primaria.
A partir de ella pueden desarrollarse niveles superiores de organización.
Estructura secundaria
- hélices α;
- láminas β;
- giros;
- regiones desordenadas.
Estructura terciaria
Representa la organización tridimensional completa de una cadena polipeptídica.
Estructura cuaternaria
Aparece cuando varias subunidades proteicas interactúan para formar un complejo funcional.
La estructura tridimensional final determina en gran medida qué moléculas puede reconocer una proteína y qué función puede realizar.
6. El principio de Anfinsen
Uno de los experimentos fundamentales de la biología molecular fue realizado por Christian B. Anfinsen y colaboradores mediante estudios sobre ribonucleasa.
Estos trabajos demostraron que, bajo determinadas condiciones, una proteína desnaturalizada podía recuperar espontáneamente su conformación funcional.
El descubrimiento condujo a un principio fundamental: la secuencia de aminoácidos contiene información esencial para determinar la estructura tridimensional de una proteína.
Este concepto transformó nuestra comprensión del plegamiento proteico.
Sin embargo, dentro de una célula la situación es considerablemente más compleja.
El citoplasma contiene concentraciones extraordinariamente elevadas de macromoléculas. Las proteínas recién sintetizadas emergen de los ribosomas rodeadas por otras proteínas, ácidos nucleicos, membranas y metabolitos.
En estas condiciones existe un riesgo permanente de interacciones inapropiadas.
Por ello, aunque la secuencia contiene la información estructural fundamental, la célula necesita sistemas especializados que favorezcan un plegamiento correcto.
Aquí aparecen las chaperonas moleculares, que serán desarrolladas ampliamente en el Capítulo II.
7. El paisaje energético del plegamiento
El plegamiento no debe imaginarse como una proteína siguiendo una única ruta rígida hasta alcanzar su forma definitiva.
Actualmente suele conceptualizarse mediante un paisaje energético.
La cadena polipeptídica puede explorar múltiples conformaciones. Algunas son inestables. Otras representan estados intermedios. Finalmente, bajo condiciones adecuadas, la proteína tiende hacia conformaciones energéticamente favorables compatibles con su función.
Puede imaginarse como un embudo: cadena desplegada -> múltiples conformaciones -> intermediarios -> estado funcional estable.
Sin embargo, el paisaje no es perfecto.
Existen rutas alternativas capaces de conducir hacia estados parcialmente plegados, estructuras aberrantes, oligómeros o agregados.
El sistema de proteostasis modifica constantemente este paisaje para favorecer estados funcionales y evitar interacciones peligrosas.
8. El problema de la agregación
Cuando regiones normalmente ocultas de una proteína quedan expuestas debido a un plegamiento incompleto o incorrecto, pueden interactuar con regiones similares de otras proteínas.
Esto puede producir asociaciones anormales.
El proceso puede progresar desde proteína mal plegada -> oligómero -> agregado -> inclusión o depósito.
Sin embargo, esta secuencia no debe interpretarse de manera simplista.
Un agregado visible no siempre constituye la especie más tóxica.
En diversas enfermedades neurodegenerativas se investiga si determinados oligómeros solubles o intermediarios de agregación pueden ser más dañinos que depósitos proteicos grandes.
Incluso el secuestro de proteínas dañadas dentro de estructuras organizadas puede representar, en determinados contextos, una estrategia celular protectora.
Por ello, agregación no es sinónimo automático de toxicidad.
Esta distinción será fundamental cuando posteriormente analicemos β-amiloide, tau, α-sinucleína y TDP-43.
9. Las proteínas están sometidas permanentemente a daño
Incluso una proteína correctamente sintetizada y plegada puede deteriorarse.
Durante su vida funcional está expuesta a:
- especies reactivas de oxígeno;
- especies reactivas de nitrógeno;
- productos de glicación;
- modificaciones químicas espontáneas;
- cambios de pH;
- alteraciones térmicas;
- metabolitos reactivos;
- errores en interacciones moleculares.
Pueden aparecer modificaciones como oxidación, carbonilación, nitración, glicación, desamidación, ruptura de enlaces y entrecruzamiento.
Algunas modificaciones cumplen funciones regulatorias normales. Otras comprometen la estructura y función de la proteína.
Esto conecta directamente el presente códice con el CÓDICE 006 - Homeostasis Redox.
10. Una proteína dañada crea un problema de control de calidad
Cuando una proteína pierde su conformación correcta, la célula debe decidir qué hacer con ella.
Existen varias posibilidades:
- Mantenerla estable mediante chaperonas.
- Favorecer su repliegamiento.
- Segregarla temporalmente.
- Degradarla mediante el sistema ubiquitina-proteasoma.
- Eliminarla mediante autofagia y lisosomas.
Estas opciones no son independientes. Constituyen diferentes brazos de una misma red.
11. Renovación del proteoma
Una característica fundamental de la vida es que sus componentes se encuentran en renovación continua.
Las proteínas son continuamente sintetizadas -> utilizadas -> modificadas -> degradadas -> reemplazadas.
Este proceso recibe el nombre de turnover proteico.
El turnover permite eliminar proteínas dañadas, modificar rápidamente funciones celulares, adaptarse a cambios ambientales, reciclar aminoácidos y remodelar tejidos.
Paradójicamente, la estabilidad del organismo depende de una renovación molecular permanente.
12. Proteoma y red de proteostasis no son lo mismo
Proteoma
Es el conjunto dinámico de proteínas presentes en un sistema biológico.
Red de proteostasis
Es el conjunto de mecanismos que controla la vida de esas proteínas: síntesis -> plegamiento -> tráfico -> vigilancia -> mantenimiento -> reparación -> segregación -> degradación -> reciclaje.
El proteoma es aquello que debe conservarse funcional. La proteostasis es el sistema que intenta conservarlo funcional.
13. La red de proteostasis
La red proteostática incluye múltiples sistemas coordinados:
- ribosomas;
- chaperonas moleculares;
- Heat Shock Proteins;
- Heat Shock Response;
- HSF1;
- ubiquitina;
- proteasoma;
- autofagia;
- lisosomas;
- ERAD;
- Unfolded Protein Response;
- sistemas de control de calidad mitocondrial;
- enzimas de reparación y modificación proteica.
La proteostasis constituye un verdadero sistema celular de toma de decisiones moleculares.
14. Capacidad proteostática y reserva proteostática
Una célula joven y funcional posee una determinada capacidad para manejar proteínas dañadas y responder a incrementos transitorios del estrés.
Podemos conceptualizar esta capacidad como una reserva proteostática.
En condiciones normales: carga de daño < capacidad de control de calidad.
Durante infecciones, ejercicio intenso, cambios térmicos, inflamación o estrés metabólico, la carga puede aumentar temporalmente.
Con el envejecimiento puede producirse una situación progresivamente diferente: carga proteotóxica (aumenta) mientras capacidad proteostática (disminuye).
Cuando ambas curvas comienzan a aproximarse, disminuye el margen de seguridad.
15. Proteostasis y envejecimiento
Con la edad pueden deteriorarse simultáneamente diferentes componentes del control de calidad proteico.
Entre los cambios descritos se encuentran alteraciones en respuesta de chaperonas, actividad proteasomal, autofagia, función lisosomal, respuesta al estrés del retículo endoplásmico y control de calidad mitocondrial.
Al mismo tiempo aumenta la exposición acumulativa a estrés oxidativo, inflamación, alteraciones metabólicas, errores moleculares y modificaciones postraduccionales aberrantes.
El problema central no es simplemente que aumente el daño. Es que puede disminuir simultáneamente la capacidad para gestionarlo.
16. Del daño proteico al estrés proteotóxico
Cuando la cantidad de proteínas dañadas, desplegadas o mal plegadas supera la capacidad de la red proteostática, puede desarrollarse estrés proteotóxico.
Este estado puede alterar membranas, organelos, metabolismo, señalización, función mitocondrial, retículo endoplásmico y respuesta inflamatoria.
La proteotoxicidad puede generar además un círculo de retroalimentación: proteína dañada -> estrés celular -> disfunción mitocondrial/redox -> mayor daño proteico -> mayor demanda proteostática.
17. Conexión con la autofagia
La autofagia es un brazo fundamental de la proteostasis. Especialmente mediante agrefagia, la célula puede reconocer y eliminar determinados agregados proteicos que resultan difíciles de procesar mediante el proteasoma.
La degradación lisosomal completa posteriormente el proceso y permite reciclar componentes.
18. Conexión con las mitocondrias
Las mitocondrias dependen de un proteoma altamente regulado. La mayoría de sus proteínas son codificadas por el genoma nuclear, sintetizadas en el citoplasma e importadas posteriormente hacia la mitocondria.
Esto exige reconocimiento, transporte, plegamiento, ensamblaje y degradación.
Se establece una relación bidireccional: disfunción mitocondrial <-> pérdida de proteostasis.
19. Conexión con la senescencia celular
La alteración de la proteostasis puede favorecer respuestas de estrés capaces de contribuir al establecimiento de senescencia.
A su vez, la senescencia modifica metabolismo, inflamación, autofagia, función lisosomal y comunicación intercelular.
Por ello, proteotoxicidad, senescencia e inflammaging pueden reforzarse mutuamente.
20. Integración con los Hallmarks del Envejecimiento
La pérdida de proteostasis se conecta con inestabilidad genómica, alteraciones epigenéticas, disfunción mitocondrial, macroautofagia disminuida, desregulación de nutrient sensing, senescencia celular, agotamiento de células madre, comunicación intercelular alterada, inflamación crónica y disbiosis.
La pérdida de proteostasis no es un mecanismo aislado; constituye uno de los nodos centrales de una red biológica interdependiente.
21. Integración con el Modelo IXUGEN®
Dentro del Modelo IXUGEN® de Longevidad Saludable, la proteostasis constituye un componente fundamental de la Reserva Molecular.
La Reserva Molecular representa la capacidad de preservar integridad genómica, regulación epigenética, calidad proteica, reparación molecular y renovación de componentes celulares.
La proteostasis depende también de Reserva Metabólica, Reserva Inmunológica, Reserva Regenerativa y Reserva Funcional.
Esta relación conecta directamente: Proteostasis -> Reserva Molecular -> Resiliencia Biológica -> Longevidad Saludable.
Aplicaciones Clínicas
Actualmente no existe una prueba clínica única capaz de determinar la calidad global del proteoma de una persona.
La proteostasis posee enorme importancia clínica porque ayuda a interpretar de manera integrada fenómenos como sarcopenia, neurodegeneración, alteraciones metabólicas, estrés del retículo endoplásmico, deterioro mitocondrial, inflamación crónica y disminución de la capacidad adaptativa.
Mito
“Una proteína producida correctamente por el ribosoma ya es funcional.”
Realidad
La síntesis constituye solamente el inicio. La proteína debe plegarse, modificarse, localizarse correctamente y mantenerse estable.
Mito
“Todas las proteínas mal plegadas forman agregados.”
Realidad
Muchas pueden ser reconocidas y refoldadas o degradadas antes de agregarse.
Mito
“Todos los agregados proteicos son necesariamente tóxicos.”
Realidad
La toxicidad depende de la proteína, el estado conformacional, la localización y el contexto.
Mito
“La proteostasis consiste únicamente en degradar proteínas.”
Realidad
Incluye síntesis, plegamiento, vigilancia, reparación, tráfico, segregación, degradación y reciclaje.
Mito
“La pérdida de proteostasis solo es importante en enfermedades neurodegenerativas.”
Realidad
El control de calidad proteico es necesario en todos los tejidos.
El envejecimiento del proteoma no depende solamente de cuánto daño acumulan las proteínas, sino de la relación entre la velocidad con que ese daño aparece y la capacidad del organismo para reconocerlo, corregirlo, aislarlo, degradarlo y reemplazarlo. La proteostasis constituye así una expresión fundamental de la Reserva Molecular: mientras la capacidad de control de calidad supera la carga proteotóxica, la célula conserva resiliencia; cuando esa reserva disminuye, pequeñas perturbaciones pueden producir consecuencias progresivamente mayores.
- El proteoma es dinámico; el genoma es comparativamente estable.
- Una proteína funcional requiere mucho más que una secuencia correcta de aminoácidos.
- El plegamiento constituye una etapa esencial del control de calidad.
- El turnover proteico es indispensable para conservar estabilidad celular.
- Agregación y toxicidad no deben utilizarse como sinónimos.
- Chaperonas, proteasoma, autofagia y lisosomas forman una red coordinada.
- El estrés oxidativo aumenta la carga proteostática.
- La disfunción mitocondrial y la pérdida de proteostasis pueden amplificarse mutuamente.
- La proteostasis constituye un componente esencial de la Reserva Molecular.
- Actualmente no existe un biomarcador clínico único que cuantifique la proteostasis global.
- 1. El proteoma representa el conjunto dinámico de proteínas de un sistema biológico.
- 2. La red de proteostasis mantiene la calidad funcional de ese proteoma.
- 3. La secuencia de aminoácidos contiene información fundamental para el plegamiento.
- 4. El ambiente celular hace necesario el apoyo de sistemas especializados de control de calidad.
- 5. Las proteínas están sometidas permanentemente a daño y modificación.
- 6. La célula puede intentar refoldar, estabilizar, segregar o degradar proteínas alteradas.
- 7. El turnover proteico constituye una forma esencial de mantenimiento molecular.
- 8. La pérdida de proteostasis aparece cuando la carga de daño comienza a superar la capacidad de respuesta.
- 9. Proteostasis, autofagia, mitocondrias, redox, inflamación y senescencia forman una red interdependiente.
- 10. La preservación de la calidad proteica constituye una dimensión fundamental de la Resiliencia Biológica.
Introducción
Una proteína no es únicamente una cadena de aminoácidos. Su función depende de que esa cadena adopte una organización tridimensional compatible con el trabajo biológico que debe realizar.
Esta relación entre estructura y función convierte al plegamiento proteico en uno de los procesos centrales de la vida celular.
Sin embargo, el plegamiento no es perfecto.
Cada proteína emerge del ribosoma dentro de un ambiente molecular extremadamente concentrado, dinámico y sometido a fluctuaciones de temperatura, pH, disponibilidad energética, especies reactivas, interacciones electrostáticas y múltiples formas de estrés.
Además, muchas proteínas no poseen una única estructura rígida. Algunas cambian de conformación como parte normal de su función, mientras que otras presentan regiones intrínsecamente desordenadas que solo adquieren organización al interactuar con otras moléculas.
Por ello, la célula debe distinguir continuamente entre flexibilidad fisiológica, intermediarios normales de plegamiento, proteínas temporalmente desplegadas, proteínas irreversiblemente dañadas y especies con capacidad de agregación.
1. La estructura tridimensional como fundamento de la función
La actividad de una proteína depende en gran medida de la disposición espacial de sus aminoácidos.
Una enzima necesita formar un sitio activo con una geometría extremadamente precisa para reconocer su sustrato. Un receptor requiere una conformación capaz de interactuar selectivamente con una señal. Una proteína estructural debe establecer interacciones mecánicas suficientemente estables. Una proteína transportadora debe modificar su conformación de manera controlada.
La función emerge de una relación íntima entre secuencia -> estructura -> dinámica -> interacción -> función.
2. Las fuerzas que determinan el plegamiento
El plegamiento proteico depende de múltiples interacciones fisicoquímicas:
- efecto hidrofóbico;
- enlaces de hidrógeno;
- interacciones electrostáticas;
- fuerzas de Van der Waals;
- puentes disulfuro;
- interacciones entre cadenas laterales.
Los aminoácidos hidrofóbicos tienden a quedar protegidos del ambiente acuoso, mientras que muchos residuos polares o cargados permanecen expuestos hacia el solvente.
3. Termodinámica del plegamiento
El plegamiento proteico puede entenderse como una búsqueda de estados conformacionales energéticamente favorables.
La proteína no adopta cualquier forma posible. Su secuencia restringe el número de configuraciones compatibles con una estabilidad suficiente.
El estado nativo corresponde a una conformación -o conjunto de conformaciones relacionadas- favorable bajo determinadas condiciones fisiológicas.
Puede modificarse por temperatura, pH, concentración de sales, cambios redox, unión de ligandos, modificaciones postraduccionales y fuerza mecánica.
4. Cinética del plegamiento
La termodinámica responde a qué conformación es más estable. La cinética plantea con qué velocidad puede alcanzarse esa conformación.
Una proteína puede poseer un estado nativo favorable y, aun así, quedar atrapada temporalmente en estados intermedios.
Estos intermediarios son importantes porque algunas regiones hidrofóbicas pueden permanecer expuestas y favorecer interacciones no deseadas.
5. El problema de Levinthal
Si una proteína tuviera que explorar aleatoriamente todas las conformaciones posibles antes de encontrar su estado funcional, el proceso requeriría tiempos astronómicos.
Esta observación clásica se conoce como paradoja de Levinthal.
La solución reside en que el plegamiento no es una búsqueda aleatoria completa. El paisaje energético posee rutas preferenciales y existen sistemas que estabilizan intermediarios, impiden contactos aberrantes y favorecen nuevas oportunidades de plegamiento.
6. Plegamiento cotraduccional
El plegamiento puede comenzar incluso antes de que la síntesis proteica haya concluido.
A medida que la cadena polipeptídica emerge del ribosoma, determinadas regiones pueden comenzar a formar estructuras locales.
La velocidad de traducción, las pausas ribosomales y la interacción con chaperonas asociadas al ribosoma pueden influir sobre la conformación final.
7. Plegamiento en diferentes compartimentos celulares
El ambiente donde se encuentra una proteína modifica profundamente sus posibilidades de plegamiento.
El citoplasma posee determinadas condiciones redox y sistemas de chaperonas. El retículo endoplásmico posee otros. Las mitocondrias cuentan con redes especializadas.
La proteostasis constituye así una red distribuida por toda la célula.
8. Proteínas intrínsecamente desordenadas
No todas las proteínas necesitan poseer una estructura tridimensional rígida y estable.
Existe un grupo de proteínas o regiones proteicas denominadas intrínsecamente desordenadas.
Estas pueden mantener una elevada flexibilidad conformacional y adoptar diferentes estructuras al interactuar con otras moléculas.
Esta propiedad resulta especialmente útil en señalización celular, regulación transcripcional, formación de complejos y organización de condensados biomoleculares.
Tau y α-sinucleína representan ejemplos relevantes.
9. Estados nativos y estados no nativos
Una proteína puede encontrarse en distintos estados:
- correctamente plegada;
- parcialmente plegada;
- desplegada;
- mal plegada;
- asociada en oligómeros;
- incorporada en agregados.
Estos estados pueden ser reversibles o irreversibles dependiendo del contexto.
10. ¿Qué es el misfolding?
El término misfolding describe una conformación proteica inapropiada respecto al estado funcional requerido.
Puede originarse por mutaciones, errores de traducción, temperatura elevada, estrés oxidativo, modificaciones químicas, alteraciones del pH, envejecimiento molecular y fallas en chaperonas.
Una proteína mal plegada puede recuperar su estructura, ser degradada, interactuar aberrantemente con otras moléculas o formar agregados.
11. Mutaciones y estabilidad proteica
Una mutación puede modificar un único aminoácido y, aun así, alterar profundamente la estabilidad de una proteína.
El cambio puede afectar núcleo hidrofóbico, unión entre dominios, interacciones electrostáticas, estabilidad local y afinidad por otras moléculas.
No todas las mutaciones generan enfermedad, porque la red de proteostasis puede compensar parcialmente determinadas alteraciones.
12. Daño oxidativo y conformación
Las especies reactivas pueden modificar residuos específicos de las proteínas, especialmente cisteína, metionina, tirosina y triptófano.
Estas modificaciones pueden alterar estructura, actividad, solubilidad y susceptibilidad a degradación.
13. Glicación y proteínas de larga vida
La glucosa y otros azúcares pueden reaccionar de manera no enzimática con proteínas y generar productos finales de glicación avanzada (AGEs).
Este fenómeno afecta especialmente proteínas de larga vida.
La glicación puede alterar elasticidad, solubilidad, interacciones y recambio.
14. Carbonilación proteica
La carbonilación representa una modificación oxidativa frecuentemente utilizada en investigación como marcador de daño proteico.
Puede modificar irreversiblemente ciertas proteínas y favorecer pérdida funcional, mayor degradación y agregación.
15. Oligomerización
Cuando varias proteínas mal plegadas interactúan, pueden formar pequeños complejos conocidos como oligómeros.
Estos intermediarios poseen especial interés porque pueden presentar propiedades biológicas distintas tanto de la proteína monomérica como del agregado final.
16. Agregación proteica
La agregación ocurre cuando proteínas o fragmentos proteicos establecen asociaciones relativamente estables y progresivas.
Puede verse favorecida por concentración elevada de proteínas, exposición de regiones hidrofóbicas, mutaciones, daño oxidativo, envejecimiento, disminución de chaperonas, deterioro del proteasoma y disminución de autofagia.
17. Fibrillas amiloides
Determinadas proteínas pueden organizarse en estructuras fibrilares con características particulares denominadas amiloides.
Estas estructuras presentan una arquitectura rica en láminas β.
El término amiloide no debe utilizarse como sinónimo universal de toxicidad.
18. Amiloide β
En la enfermedad de Alzheimer, fragmentos de β-amiloide pueden asociarse y formar diferentes especies moleculares: monómeros, oligómeros, fibrillas y placas.
La relación exacta entre cada especie y el daño neuronal continúa siendo un campo de investigación extremadamente activo.
19. Tau
Tau es una proteína asociada normalmente a microtúbulos.
En determinadas condiciones puede sufrir modificaciones postraduccionales y cambios conformacionales que favorecen su acumulación.
Las alteraciones de tau afectan estabilidad del citoesqueleto, transporte axonal y función neuronal.
20. α-sinucleína
La α-sinucleína es una proteína neuronal con regiones intrínsecamente desordenadas.
Puede adoptar diferentes conformaciones y, bajo determinadas condiciones, formar oligómeros y fibrillas.
Su agregación se encuentra relacionada con Parkinson y otras sinucleinopatías.
21. TDP-43
TDP-43 es una proteína implicada en metabolismo del ARN.
Su relocalización y agregación anómala aparecen en diferentes enfermedades neurodegenerativas.
22. Condensados biomoleculares y separación de fases
Determinadas proteínas y ARN pueden organizarse mediante separación de fases líquido-líquido.
Este mecanismo permite formar compartimentos celulares sin membrana como gránulos de estrés, nucléolos y cuerpos nucleares.
La formación de condensados es fisiológica, pero alteraciones persistentes pueden favorecer transiciones hacia estados menos dinámicos y potencialmente agregados.
23. La concentración importa
Incluso una proteína normal puede agregarse si su concentración supera determinados límites.
Por ello, la célula regula cuidadosamente síntesis, degradación, localización y solubilidad.
24. El tiempo importa
Una proteína puede ser estable durante un periodo determinado y posteriormente deteriorarse.
El envejecimiento aumenta el tiempo acumulativo durante el cual las proteínas están expuestas a oxidación, glicación, modificaciones espontáneas e interacciones aberrantes.
25. El entorno molecular cambia con la edad
Con el envejecimiento pueden modificarse disponibilidad energética, capacidad antioxidante, función mitocondrial, autofagia, proteasoma, actividad de chaperonas e inflamación.
Así, una secuencia proteica idéntica puede comportarse de manera diferente en una célula joven y en una célula envejecida.
26. El umbral proteotóxico
Mientras la cantidad de especies proteicas anómalas permanezca por debajo de la capacidad de chaperonas, proteasoma, autofagia y lisosomas, la célula puede mantener homeostasis.
Cuando la carga supera ese umbral, aumenta la probabilidad de agregación, estrés del retículo, disfunción mitocondrial, inflamación, senescencia y apoptosis.
27. Integración con los Hallmarks del Envejecimiento
El misfolding y la agregación conectan directamente con disfunción mitocondrial, macroautofagia disminuida, alteraciones epigenéticas, inflammaging, senescencia celular y agotamiento de células madre.
28. Integración con el Modelo IXUGEN®
Desde el Modelo IXUGEN®, el plegamiento correcto representa una expresión concreta de la Reserva Molecular.
La vulnerabilidad proteostática aumenta cuando disminuyen simultáneamente Reserva Molecular, Reserva Metabólica y Reserva Inmunológica, y sus consecuencias repercuten sobre Reserva Regenerativa y Reserva Funcional.
Aplicaciones Clínicas
El estudio del plegamiento y la agregación tiene relevancia clínica directa en neurología, cardiología, hepatología, metabolismo, enfermedades musculares y enfermedades hereditarias por proteínas inestables.
Las patologías proteotóxicas suelen involucrar simultáneamente genética, proteostasis, metabolismo, inflamación, inmunidad, mitocondrias y envejecimiento.
Mito
“Cada proteína posee una única estructura rígida.”
Realidad
Muchas proteínas muestran flexibilidad conformacional y algunas poseen regiones intrínsecamente desordenadas.
Mito
“El misfolding siempre es irreversible.”
Realidad
Determinadas proteínas pueden recuperar una conformación funcional con ayuda de chaperonas.
Mito
“La placa o agregado visible es siempre la estructura más tóxica.”
Realidad
En algunos contextos, especies oligoméricas o intermediarias pueden ser especialmente relevantes.
Mito
“Solo las mutaciones provocan proteínas mal plegadas.”
Realidad
Temperatura, oxidación, glicación, alteraciones metabólicas y fallas en la red de control de calidad también pueden inducir misfolding.
Mito
“La agregación proteica es exclusiva del cerebro.”
Realidad
La pérdida de control de calidad proteico puede afectar prácticamente cualquier tejido.
Una proteína no envejece únicamente porque pase el tiempo; envejece porque cambia el entorno molecular encargado de mantenerla funcional. La secuencia puede permanecer intacta mientras disminuyen la energía disponible, la capacidad antioxidante, la actividad de las chaperonas y los mecanismos de degradación. La pérdida de proteostasis representa, por tanto, una interacción entre vulnerabilidad estructural y reducción progresiva de la Reserva Molecular.
- Estructura y función proteica son inseparables.
- El plegamiento comienza frecuentemente durante la traducción.
- Las proteínas no necesariamente poseen una única conformación rígida.
- Misfolding no equivale automáticamente a agregación.
- Agregación no equivale automáticamente a toxicidad.
- Oligómeros, fibrillas e inclusiones representan estados biológicamente diferentes.
- Oxidación y glicación pueden modificar la estabilidad proteica.
- La concentración proteica influye sobre el riesgo de agregación.
- La edad modifica el ambiente molecular donde las proteínas deben mantenerse funcionales.
- La reserva proteostática determina cuánto estrés puede tolerar una célula antes de perder homeostasis.
- 1. La función proteica depende de una organización tridimensional adecuada.
- 2. El plegamiento es un proceso termodinámico y cinético.
- 3. El ambiente celular condiciona el resultado del plegamiento.
- 4. Muchas proteínas presentan flexibilidad fisiológica.
- 5. El misfolding puede ser reversible o conducir a degradación y agregación.
- 6. Oligómeros y agregados no poseen necesariamente la misma toxicidad.
- 7. El daño oxidativo, la glicación y otras modificaciones pueden alterar el proteoma aun sin mutaciones genéticas.
- 8. La concentración y la vida media de una proteína son variables críticas de proteostasis.
- 9. El envejecimiento disminuye progresivamente el margen entre carga proteotóxica y capacidad de control.
- 10. La pérdida de conformación funcional constituye uno de los primeros pasos hacia el estrés proteotóxico.
Introducción
La vida celular depende de una vigilancia molecular prácticamente continua.
Cada segundo, miles de proteínas se sintetizan, modifican, transportan, interactúan y degradan. Durante este proceso, algunas alcanzan correctamente su conformación funcional, mientras otras quedan parcialmente plegadas, sufren modificaciones químicas o pierden estabilidad como consecuencia del estrés.
La célula debe resolver entonces una serie de decisiones críticas: ¿puede recuperarse esta proteína?, ¿debe mantenerse temporalmente estable?, ¿es necesario impedir que interactúe con otras moléculas?, ¿debe ser eliminada?, ¿qué sistema degradativo es el más adecuado?
Estas decisiones constituyen el núcleo del control de calidad proteico.
1. La lógica del control de calidad proteico
Puede imaginarse la proteostasis como un sistema de triage molecular.
Una proteína alterada puede seguir diferentes destinos: recuperación, contención, segregación o degradación.
La decisión depende de gravedad del daño, solubilidad, tamaño, localización celular, disponibilidad energética, capacidad de las chaperonas, actividad del proteasoma, capacidad autofágica y estado metabólico.
2. Reconocimiento de proteínas alteradas
Una de las señales más importantes es la exposición de regiones que normalmente deberían permanecer ocultas dentro de la estructura tridimensional.
Entre ellas destacan residuos hidrofóbicos, dominios incompletamente plegados, regiones desorganizadas y secuencias de degradación expuestas.
3. Chaperonas moleculares: guardianes del plegamiento
Las chaperonas moleculares son proteínas que ayudan a otras proteínas a alcanzar o mantener conformaciones funcionales.
Entre sus principales funciones se encuentran estabilizar proteínas recién sintetizadas, evitar agregación, favorecer refolding, facilitar transporte intracelular y colaborar en degradación.
Muchas pertenecen a familias conocidas como Heat Shock Proteins (HSP).
4. Heat Shock Proteins
Las HSP responden a estrés térmico, estrés oxidativo, inflamación, hipoxia, tóxicos, ejercicio, daño metabólico y proteínas mal plegadas.
Entre las principales familias destacan HSP70, HSP90, HSP60, HSP40 y pequeñas HSP.
5. HSP70
La familia HSP70 reconoce regiones hidrofóbicas expuestas en proteínas recién sintetizadas o parcialmente desplegadas.
Su ciclo funcional depende de ATP: reconocimiento -> unión -> estabilización -> liberación -> nuevo intento de plegamiento.
6. HSP40 y cochaperonas
Proteínas de la familia HSP40/DNAJ ayudan a reconocer sustratos y regulan la actividad de HSP70.
Existen además numerosas cochaperonas que modifican afinidad por sustratos, consumo de ATP, localización y destino de las proteínas dañadas.
7. HSP90
HSP90 participa especialmente en la estabilización y maduración de proteínas reguladoras como quinasas, receptores hormonales y factores de transcripción.
8. Chaperoninas
Las chaperoninas constituyen complejos de gran tamaño capaces de proporcionar un ambiente relativamente aislado donde determinadas proteínas pueden plegarse.
9. Heat Shock Response
Cuando aumenta significativamente la carga de proteínas mal plegadas, la célula activa una respuesta adaptativa conocida como Heat Shock Response.
Uno de sus principales reguladores es HSF1: HSF1 se activa -> aumenta expresión de HSP -> aumenta capacidad de plegamiento y protección.
10. HSF1 y envejecimiento
HSF1 cumple funciones centrales en respuesta térmica, metabolismo, proteostasis, estrés oxidativo y supervivencia celular.
En varios modelos experimentales, la capacidad de activar respuestas proteostáticas disminuye con la edad.
11. Refolding versus degradación
Uno de los puntos de decisión más importantes consiste en determinar cuándo dejar de intentar reparar una proteína.
Mientras el daño sea reversible, las chaperonas pueden favorecer refolding. Cuando las posibilidades de recuperación disminuyen, la proteína puede ser transferida hacia sistemas de degradación.
12. Ubiquitinación como señal de destino
Una de las formas más importantes de marcar una proteína para degradación es la ubiquitinación.
La ubiquitina puede unirse covalentemente a proteínas objetivo mediante una cascada E1 -> E2 -> E3.
Las E3 aportan gran parte de la especificidad del sistema.
13. No toda ubiquitinación significa degradación
La ubiquitina puede influir sobre tráfico celular, reparación del ADN, señalización, endocitosis y degradación.
Por ello, ubiquitinación y destrucción proteica no son sinónimos absolutos.
14. Sistema ubiquitina-proteasoma
El sistema ubiquitina-proteasoma representa una de las principales vías de degradación selectiva de proteínas intracelulares.
Su función es especialmente importante para proteínas de vida corta, reguladores celulares, proteínas mal plegadas solubles y proteínas dañadas.
15. Proteasoma 26S
El proteasoma 26S está compuesto esencialmente por núcleo catalítico 20S y partículas reguladoras 19S.
La región reguladora reconoce proteínas ubiquitinadas, elimina la ubiquitina, despliega el sustrato y facilita su entrada al núcleo catalítico.
Dentro del proteasoma, la proteína se fragmenta en péptidos y posteriormente sus componentes pueden reutilizarse.
16. Proteasoma 20S y proteínas oxidadas
El núcleo 20S puede participar en la degradación de determinadas proteínas oxidadas sin requerir necesariamente el mismo tipo de señalización ubiquitina-dependiente.
17. Cuando el proteasoma no es suficiente
Grandes agregados y complejos proteicos pueden superar la capacidad del proteasoma.
En estas circunstancias cobran mayor importancia segregación, agrefagia, autofagia y degradación lisosomal.
Proteasoma y autofagia no compiten; cooperan.
18. Agresomas
Cuando aumenta la cantidad de proteínas mal plegadas, la célula puede concentrarlas en regiones específicas conocidas como agresomas.
Este mecanismo permite reducir interacciones aleatorias, concentrar proteínas dañadas y facilitar reconocimiento por sistemas degradativos.
19. Agrefagia
La agrefagia es una forma selectiva de autofagia dirigida contra agregados proteicos.
Conecta ubiquitina, carga proteica y maquinaria autofágica; posteriormente los autofagosomas transportan el material hacia lisosomas.
20. Autofagia mediada por chaperonas
En CMA, determinadas proteínas citosólicas que contienen motivos específicos son reconocidas por chaperonas y dirigidas hacia la membrana lisosomal, donde son degradadas.
21. El lisosoma como estación final de reciclaje
Los lisosomas contienen enzimas capaces de degradar proteínas, lípidos, carbohidratos y componentes celulares.
La degradación proteica termina frecuentemente en un mismo objetivo: recuperar componentes reutilizables y evitar acumulación de estructuras dañadas.
22. Reparación versus reemplazo
Una célula posee dos grandes estrategias para mantener proteínas funcionales: reparar la molécula existente o destruirla y sintetizar una nueva.
23. Turnover y dinámica del proteoma
Cada proteína posee una vida media característica. La degradación es también un mecanismo regulador.
Eliminar una proteína puede ser tan importante como producirla.
24. Proteostasis y consumo energético
Mantener el proteoma funcional es metabólicamente costoso.
Requiere energía para síntesis proteica, ciclos de chaperonas, ubiquitinación, proteasoma, autofagia y transporte intracelular.
25. Nutrient sensing y proteostasis
mTOR, AMPK e insulina/IGF-1 regulan el equilibrio entre síntesis y degradación.
La proteostasis depende del equilibrio entre anabolismo <-> mantenimiento <-> degradación.
26. Proteostasis y hormesis
Una exposición moderada y transitoria a determinados tipos de estrés puede activar respuestas adaptativas.
Ejemplos incluyen ejercicio, estrés térmico, ayuno y estrés oxidativo moderado.
Sin embargo, la relación depende de dosis, duración, estado clínico y capacidad adaptativa.
27. El problema del exceso de estrés
Cuando el estrés supera la reserva proteostática, aumentan proteínas desplegadas, se saturan chaperonas, disminuye la eficacia degradativa, aumenta agregación, aparece estrés del retículo y aumenta riesgo de senescencia o apoptosis.
28. El envejecimiento como pérdida de capacidad de triage
Con la edad puede deteriorarse no solo la cantidad de chaperonas o la actividad degradativa, sino también la capacidad para tomar decisiones proteostáticas eficientes.
29. Integración con los Hallmarks del Envejecimiento
El control de calidad proteico interactúa directamente con alteraciones epigenéticas, disfunción mitocondrial, desregulación de nutrient sensing, macroautofagia disminuida, senescencia celular, inflamación crónica y agotamiento de células madre.
30. Integración con el Modelo IXUGEN®
Dentro del Modelo IXUGEN®, el control de calidad proteico representa uno de los componentes centrales de la Reserva Molecular.
La salud biológica puede interpretarse como una relación entre carga de daño y capacidad de respuesta.
Aplicaciones Clínicas
El conocimiento del control de calidad proteico posee implicaciones en enfermedades neurodegenerativas, miopatías, cáncer, enfermedades hepáticas, cardiomiopatías y trastornos metabólicos.
Mito
“Las chaperonas reparan directamente todas las proteínas dañadas.”
Realidad
Principalmente favorecen estabilidad, evitan interacciones aberrantes y facilitan oportunidades de refolding.
Mito
“Una proteína ubiquitinada necesariamente será destruida.”
Realidad
La ubiquitina participa también en múltiples procesos de señalización y tráfico celular.
Mito
“El proteasoma elimina cualquier agregado.”
Realidad
Grandes agregados pueden requerir mecanismos autofágicos y lisosomales.
Mito
“Autofagia y proteasoma realizan la misma función.”
Realidad
Son sistemas complementarios con preferencias y capacidades diferentes.
Mito
“Cuanta más degradación proteica, mejor.”
Realidad
La proteostasis exige equilibrio. La degradación excesiva también puede producir pérdida funcional.
La calidad del proteoma no depende de eliminar indiscriminadamente proteínas dañadas, sino de tomar decisiones correctas sobre cada molécula: preservar lo funcional, rescatar lo recuperable, aislar lo peligroso y eliminar lo irreparable. La eficiencia de este triage molecular constituye una de las expresiones más profundas de la Reserva Molecular y ayuda a explicar por qué el envejecimiento puede entenderse como una pérdida progresiva de capacidad adaptativa, más que como una simple acumulación pasiva de daño.
- Chaperonas y sistemas degradativos funcionan como una red.
- HSP70 constituye uno de los principales sistemas de estabilización proteica.
- HSF1 coordina la Heat Shock Response.
- Ubiquitinación no equivale siempre a degradación.
- Las E3 ligasas aportan gran parte de la especificidad del sistema ubiquitina.
- El proteasoma 26S degrada numerosas proteínas ubiquitinadas.
- Autofagia y proteasoma son complementarios.
- La agrefagia está especializada en determinadas estructuras agregadas.
- La CMA conecta reconocimiento por chaperonas con degradación lisosomal.
- Mantener proteostasis requiere una inversión energética significativa.
- El envejecimiento puede reducir la precisión del triage proteico.
- 1. La célula posee un sistema continuo de control de calidad proteico.
- 2. Las chaperonas determinan si determinadas proteínas pueden mantenerse o recuperar funcionalidad.
- 3. El destino de una proteína dañada depende de múltiples señales.
- 4. Ubiquitina constituye una plataforma de señalización molecular.
- 5. El proteasoma es fundamental para degradación selectiva.
- 6. Agregados grandes requieren con frecuencia autofagia y lisosomas.
- 7. El turnover proteico es indispensable para mantener funcional el proteoma.
- 8. Proteostasis depende directamente de la disponibilidad energética.
- 9. El estrés moderado puede activar respuestas adaptativas, pero el exceso supera la reserva.
- 10. La resiliencia proteostática depende de la capacidad para equilibrar reparación y degradación.
Introducción
La proteostasis no desaparece de manera súbita con el envejecimiento. Su deterioro suele producirse de forma progresiva, heterogénea y dependiente del tejido.
Durante la juventud, las células cuentan con una amplia capacidad para absorber fluctuaciones en la carga de daño proteico.
Con el paso del tiempo, este sistema puede perder eficiencia en varios niveles simultáneamente.
El envejecimiento aumenta la carga de proteínas dañadas y, al mismo tiempo, puede reducir la capacidad para reconocerlas, repararlas, degradarlas o reciclarlas.
El problema no es únicamente más daño. Es también menos capacidad de respuesta.
1. El envejecimiento del proteoma
El proteoma envejecido no constituye simplemente una versión más antigua del proteoma joven.
A lo largo de la vida se producen cambios en abundancia proteica, modificaciones postraduccionales, oxidación, glicación, estabilidad conformacional, turnover, localización celular, formación de complejos y agregación.
2. Proteínas de larga vida
Algunas proteínas poseen vidas medias muy prolongadas, como proteínas presentes en cristalino, matriz extracelular, estructuras neuronales y tejidos conectivos.
Cuanto mayor sea la vida media de una proteína, mayor será el tiempo durante el cual puede acumular oxidación, glicación, desamidación, isomerización, entrecruzamientos y fragmentación.
3. Acumulación de proteínas oxidadas
Las proteínas oxidadas pueden presentar pérdida de actividad, menor estabilidad, cambios de solubilidad y mayor susceptibilidad a agregación.
Con el envejecimiento, la acumulación puede aumentar cuando la velocidad de daño supera la capacidad de eliminación.
4. Glicación y envejecimiento estructural
La glicación no enzimática aumenta progresivamente con el tiempo y puede afectar especialmente proteínas con bajo turnover.
La formación de AGEs puede generar entrecruzamientos, rigidez, alteración de interacciones y resistencia a degradación.
5. Deterioro de la respuesta de chaperonas
La capacidad de activar respuestas de choque térmico puede disminuir con la edad en diferentes modelos biológicos.
Esto puede implicar menor activación de HSF1, menor inducción de HSP, respuesta más lenta y menor capacidad para estabilizar proteínas vulnerables.
6. HSF1 como nodo de resiliencia
HSF1 interactúa con metabolismo, inflamación, función mitocondrial y supervivencia celular.
Una reducción de su capacidad funcional puede tener consecuencias que superan ampliamente el plegamiento proteico.
7. Cambios en la actividad proteasomal
Diversos estudios han descrito alteraciones relacionadas con la edad en el sistema ubiquitina-proteasoma.
Sin embargo, este fenómeno no es uniforme en todos los tejidos.
La visión correcta es que el control proteasomal puede remodelarse y perder eficiencia de manera específica según tejido, contexto y carga de estrés.
8. Saturación del proteasoma
Incluso cuando la actividad proteasomal se conserva parcialmente, una carga excesiva de proteínas dañadas puede superar su capacidad.
9. Deterioro de la autofagia
La macroautofagia puede deteriorarse progresivamente con la edad, disminuyendo la capacidad para eliminar agregados, complejos proteicos y organelos dañados.
Menos autofagia -> más daño mitocondrial -> más ROS -> más daño proteico.
10. Autofagia mediada por chaperonas y envejecimiento
La CMA también puede deteriorarse con la edad, disminuyendo la eliminación selectiva de determinadas proteínas citosólicas.
11. Lisosomas envejecidos
Los lisosomas pueden experimentar alteraciones de acidificación, acumulación de material no degradable, lipofuscina, cambios en hidrolasas y menor eficiencia de reciclaje.
12. Lipofuscina
La lipofuscina es un pigmento autofluorescente que se acumula en diferentes células postmitóticas con la edad.
Está formada por una mezcla compleja de lípidos oxidados, proteínas modificadas y productos de degradación.
13. Estrés del retículo endoplásmico
Cuando aumenta la cantidad de proteínas desplegadas o mal plegadas en el retículo endoplásmico aparece estrés del RE y se activa la UPR.
Esta respuesta intenta reducir carga de nueva síntesis, aumentar chaperonas, mejorar degradación y restaurar homeostasis.
14. La transición de adaptación a enfermedad
Muchos mecanismos inicialmente protectores pueden convertirse en perjudiciales cuando permanecen activados de manera crónica.
Esto ocurre con Heat Shock Response, UPR, inflamación, autofagia y senescencia.
15. Pérdida de flexibilidad proteostática
Durante el envejecimiento, la célula puede presentar menor capacidad para aumentar chaperonas, menor ajuste de traducción, respuesta degradativa más lenta y recuperación incompleta después del estrés.
16. Proteostasis y metabolismo energético
La síntesis y el control de calidad proteico consumen cantidades importantes de energía.
Se establece un circuito: fallo energético -> deterioro proteostático -> mayor disfunción mitocondrial -> menor energía.
17. Proteostasis mitocondrial
Las mitocondrias poseen sus propios sistemas de vigilancia proteica: chaperonas mitocondriales, proteasas, control de importación y respuesta al estrés mitocondrial.
18. Inflamación y proteotoxicidad
La inflamación crónica modifica el ambiente proteico mediante ROS, RNS, citocinas, cambios metabólicos y estrés del retículo.
A su vez, proteínas dañadas y señales procedentes de organelos disfuncionales pueden activar rutas inflamatorias.
19. Inflammaging como presión proteostática
Durante el envejecimiento, la inflamación sistémica de bajo grado aumenta la exposición sostenida de los tejidos a señales de estrés.
La carga basal aumenta y queda menos reserva disponible para responder a nuevos desafíos.
20. Senescencia celular
El estrés proteotóxico persistente puede contribuir a activar vías relacionadas con p53, p21, p16INK4a y NF-κB.
Puede generarse un círculo: pérdida de proteostasis -> senescencia -> SASP -> mayor estrés proteostático.
21. Agotamiento de células madre
Las células madre necesitan preservar durante años o décadas un proteoma de alta calidad.
Cuando estos sistemas se deterioran, aumenta el riesgo de pérdida de autorrenovación, diferenciación anómala, senescencia y agotamiento funcional.
22. Proteostasis y sistema nervioso
Las neuronas presentan una vulnerabilidad particular por ser células de larga vida y en gran medida postmitóticas, con alta dependencia de transporte axonal, mitocondrias, tráfico vesicular, sinapsis y proteostasis local.
23. No todas las células envejecen igual
La pérdida de proteostasis es heterogénea y depende de tipo celular, tasa metabólica, capacidad proliferativa, función, exposición ambiental, actividad degradativa y carga de proteínas de larga vida.
24. Proteostasis extracelular
El espacio extracelular contiene numerosas proteínas que deben conservarse funcionales, entre ellas colágeno, elastina, factores circulantes y proteínas plasmáticas.
25. Comunicación intercelular y proteostasis
Una célula con estrés proteotóxico puede alterar la función de otras mediante citocinas, factores de estrés, vesículas extracelulares, metabolitos y SASP.
26. Disbiosis y proteostasis
La microbiota intestinal puede influir indirectamente sobre el ambiente proteostático mediante metabolitos, inflamación, permeabilidad intestinal y regulación inmunológica.
27. El concepto de colapso proteostático
Puede conceptualizarse una transición progresiva:
- Fase 1: compensación.
- Fase 2: reducción de reserva.
- Fase 3: vulnerabilidad.
- Fase 4: sobrecarga.
- Fase 5: colapso proteostático.
El término colapso describe la pérdida del equilibrio entre demanda y capacidad.
28. Reserva proteostática y resiliencia
Modelo conceptual: Reserva Proteostática = Capacidad de Control de Calidad − Carga Proteotóxica.
Mientras el resultado sea amplio, la célula conserva elevada tolerancia al estrés.
29. Integración con los Hallmarks del Envejecimiento
La pérdida de proteostasis interactúa con inestabilidad genómica, alteraciones epigenéticas, desregulación de nutrient sensing, disfunción mitocondrial, macroautofagia disminuida, senescencia celular, agotamiento de células madre, comunicación intercelular alterada, inflamación crónica y disbiosis.
30. Integración con el Modelo IXUGEN®
En el Modelo IXUGEN®, la pérdida de proteostasis representa una disminución de la Reserva Molecular, pero sus repercusiones alcanzan todas las reservas.
Aplicaciones Clínicas
La pérdida de proteostasis ayuda a comprender fenómenos clínicos como neurodegeneración, sarcopenia, deterioro hepático metabólico, cardiomiopatías, fragilidad y menor tolerancia al estrés.
Mito
“La pérdida de proteostasis aparece únicamente al final de la vida.”
Realidad
Cambios en la capacidad de respuesta proteostática pueden aparecer mucho antes de la manifestación clínica de enfermedades.
Mito
“El envejecimiento proteico ocurre igual en todos los tejidos.”
Realidad
Existe una gran heterogeneidad tisular.
Mito
“Si aumenta la cantidad de proteínas dañadas, necesariamente significa que el proteasoma está fallando.”
Realidad
La acumulación también puede deberse a un aumento de carga que supera una capacidad degradativa relativamente conservada.
Mito
“Autofagia y proteasoma disminuyen siempre de forma uniforme con la edad.”
Realidad
Los cambios son dependientes del tejido, contexto y mecanismo específico.
Mito
“El colapso proteostático significa que la célula ya no puede degradar proteínas.”
Realidad
Describe una pérdida relativa del equilibrio entre carga de daño y capacidad de respuesta.
La pérdida de proteostasis durante el envejecimiento puede entenderse como una reducción progresiva del margen de seguridad molecular. Mientras una célula joven dispone de suficiente capacidad para absorber daño, reparar proteínas y eliminar estructuras irreversibles, la célula envejecida opera cada vez más cerca de su límite. El envejecimiento proteostático no representa únicamente una acumulación de residuos: representa la pérdida de la reserva necesaria para recuperarse después del estrés.
- La carga proteotóxica aumenta mientras la reserva proteostática puede disminuir.
- Las proteínas de larga vida son especialmente vulnerables a modificaciones acumulativas.
- Oxidación y glicación contribuyen al envejecimiento del proteoma.
- La respuesta de chaperonas puede perder capacidad adaptativa.
- La actividad proteasomal no cambia de forma idéntica en todos los tejidos.
- Autofagia y lisosomas son fundamentales para controlar agregados y organelos dañados.
- La disfunción mitocondrial amplifica el estrés proteotóxico.
- Inflammaging y pérdida de proteostasis se retroalimentan.
- La senescencia puede ser causa y consecuencia del deterioro proteostático.
- El concepto clínicamente relevante es la pérdida de reserva, no solo la presencia de proteínas dañadas.
- 1. El envejecimiento modifica la composición y la calidad del proteoma.
- 2. Las proteínas de larga vida acumulan modificaciones especialmente relevantes.
- 3. El daño proteico aumenta por oxidación, glicación y otros procesos.
- 4. Chaperonas, proteasoma, autofagia y lisosomas pueden perder eficiencia o flexibilidad.
- 5. La capacidad degradativa depende de tejido y contexto.
- 6. La pérdida de proteostasis se amplifica mediante disfunción mitocondrial e inflamación.
- 7. Senescencia y proteotoxicidad pueden formar ciclos de retroalimentación.
- 8. Las células madre requieren una proteostasis especialmente estricta.
- 9. El colapso proteostático representa la pérdida de equilibrio entre demanda y capacidad.
- 10. La Reserva Proteostática constituye una dimensión esencial de la Resiliencia Biológica.
Introducción
El estudio de la proteostasis obliga a reconsiderar una idea fundamental de la biología humana: la estabilidad de una célula no depende de conservar indefinidamente sus componentes, sino de renovarlos de manera suficientemente precisa para mantener la función.
Las proteínas se sintetizan, pliegan, modifican, transportan, interactúan, envejecen y finalmente son degradadas. Durante todo este recorrido están sometidas a una vigilancia continua que intenta preservar aquellas moléculas que continúan siendo funcionales y retirar aquellas cuya estructura o comportamiento representan una amenaza para la homeostasis.
La proteostasis no puede reducirse al plegamiento proteico ni a la eliminación de agregados. Constituye una red dinámica que abarca todo el ciclo de vida de las proteínas.
Este concepto integra: síntesis -> plegamiento -> vigilancia -> mantenimiento -> reparación -> segregación -> degradación -> reciclaje.
1. El ciclo de vida de una proteína
Toda proteína atraviesa un ciclo biológico.
El proceso comienza con la expresión génica y puede seguir la secuencia: síntesis -> plegamiento -> maduración -> localización -> función -> mantenimiento -> degradación.
Cada etapa representa una oportunidad para completar correctamente el proceso, introducir errores, detectar alteraciones o activar mecanismos correctivos.
2. La síntesis también forma parte de la proteostasis
La célula regula cantidad de ARN mensajero, velocidad de traducción, disponibilidad de ribosomas, disponibilidad de aminoácidos, actividad de mTOR y respuesta al estrés.
Producir demasiada proteína puede convertirse en un problema proteostático.
La célula debe equilibrar demanda funcional <-> capacidad de síntesis <-> capacidad de plegamiento <-> capacidad degradativa.
3. Plegamiento como primer control funcional
La red proteostática facilita que la proteína permanezca dentro de un espacio conformacional compatible con su función.
No intenta inmovilizarla en una única estructura, sino impedir que cruce hacia estados incompatibles con la función o capaces de producir interacciones patológicas.
4. Mantenimiento durante la vida funcional
Una proteína correctamente plegada continúa siendo vulnerable a oxidación, glicación, modificaciones aberrantes, daño térmico, fragmentación y alteraciones mecánicas.
La proteostasis es también un problema de mantenimiento molecular.
5. La decisión crítica: conservar o eliminar
Puede existir un continuo: funcional -> parcialmente alterada -> recuperable -> irreparable -> potencialmente tóxica.
El éxito de la proteostasis depende de que la decisión entre conservar, reparar, aislar o eliminar se produzca de manera suficientemente rápida y específica.
6. Eliminación selectiva
El sistema ubiquitina-proteasoma permite seleccionar numerosas proteínas que deben ser eliminadas.
La autofagia y los lisosomas manejan cargas diferentes, incluyendo agregados, complejos proteicos y estructuras celulares de mayor tamaño.
7. Reciclaje molecular
La degradación proteica no representa el final absoluto del proceso.
Los aminoácidos liberados pueden reutilizarse: degradación -> reciclaje -> nueva síntesis.
8. La proteostasis como economía molecular
Mantener un proteoma funcional tiene un costo elevado.
La célula invierte energía en traducción, chaperonas, transporte, ubiquitinación, proteasoma, autofagia y función lisosomal.
9. Reserva proteostática
La célula dispone de un margen adicional que puede activarse cuando aumenta el estrés.
Este margen puede conceptualizarse como Reserva Proteostática e incluye capacidad de incrementar chaperonas, reserva proteasomal, capacidad autofágica, función lisosomal, flexibilidad metabólica y disponibilidad energética.
10. Carga proteotóxica
La carga proteotóxica aumenta con proteínas mal plegadas, daño oxidativo, glicación, mutaciones, estrés térmico, inflamación, disfunción mitocondrial y alteraciones metabólicas.
Modelo conceptual: Reserva Proteostática = Capacidad de control de calidad − Carga proteotóxica.
11. El envejecimiento estrecha el margen
Durante el envejecimiento pueden ocurrir simultáneamente carga proteotóxica (aumenta) y reserva proteostática (disminuye).
Esta convergencia disminuye progresivamente el margen de seguridad.
12. La pérdida de proteostasis no es uniforme
La evidencia indica que algunos sistemas disminuyen, otros se remodelan, otros muestran respuestas compensatorias y algunos pueden mantenerse relativamente estables durante periodos prolongados.
La pérdida de proteostasis es gradual, heterogénea y dependiente del tejido y del contexto.
13. Proteostasis y edad biológica
La pérdida de proteostasis puede contribuir a la separación entre edad cronológica y edad biológica.
Dos individuos de la misma edad pueden presentar diferencias en función mitocondrial, inflamación, composición corporal, metabolismo, capacidad autofágica y respuesta al estrés.
14. El músculo como ejemplo de proteostasis dinámica
Para conservar masa y función muscular es necesario sintetizar proteínas contráctiles, eliminar proteínas dañadas, reparar estructuras y remodelarse después del ejercicio.
Un aumento aislado de síntesis no garantiza calidad proteica.
15. El cerebro como ejemplo de vulnerabilidad
Muchas neuronas deben funcionar durante toda la vida y no pueden resolver fácilmente la acumulación de daño mediante división celular.
Además, mantienen axones extensos, sinapsis, transporte intracelular complejo y elevada demanda energética.
16. El hígado como ejemplo metabólico
El hígado mantiene una intensa actividad de síntesis, secreción, metabolismo y detoxificación.
Su retículo endoplásmico procesa grandes cantidades de proteínas y las alteraciones metabólicas crónicas pueden aumentar la presión sobre la red proteostática.
17. El sistema inmunológico
La activación inmunológica requiere cambios rápidos en síntesis proteica.
Al mismo tiempo, la inflamación persistente puede aumentar daño molecular.
18. Proteostasis y matriz extracelular
El proteoma extracelular también envejece.
Proteínas como colágeno, elastina, laminina y fibronectina pueden sufrir modificaciones acumulativas que cambian rigidez, elasticidad, señalización mecánica e interacción con células.
19. Proteostasis y células madre
Las células madre deben mantener la calidad de su proteoma durante periodos prolongados.
La calidad del proteoma constituye una condición necesaria para mantener la Reserva Regenerativa.
20. Proteostasis y senescencia
Puede generarse una secuencia: pérdida de proteostasis -> estrés -> senescencia y posteriormente senescencia -> SASP -> inflamación -> mayor presión proteostática.
21. Proteostasis e inflammaging
El inflammaging aumenta estrés oxidativo, señales inflamatorias, demanda metabólica y estrés del retículo.
La relación es bidireccional y autorreforzante.
22. Proteostasis y microbiota
La microbiota puede modificar el ambiente sistémico mediante metabolitos, señalización inmunológica, permeabilidad intestinal e inflamación.
Esta conexión debe tratarse con prudencia y sin extrapolaciones excesivas.
23. Aplicaciones Clínicas integradas
Desde la práctica clínica actual, la proteostasis constituye principalmente un marco fisiopatológico.
No existe todavía una prueba rutinaria capaz de responder qué tan buena es la proteostasis global de un paciente.
En investigación pueden estudiarse proteínas ubiquitinadas, carbonilos proteicos, agregados, actividad proteasomal, marcadores autofágicos, UPR y proteómica.
24. Proteostasis como objetivo preventivo
El conocimiento disponible no justifica actualmente intervenciones clínicas dirigidas a “rejuvenecer el proteoma” de manera directa.
La estrategia mejor respaldada continúa siendo preservar los sistemas biológicos que sostienen la proteostasis: actividad física, adecuada nutrición, mantenimiento de masa muscular, sueño, control metabólico, prevención del tabaquismo y reducción de enfermedades crónicas mal controladas.
Integración definitiva con los Hallmarks del Envejecimiento
La pérdida de proteostasis ocupa una posición central dentro de la red de Hallmarks.
Interactúa con inestabilidad genómica, alteraciones epigenéticas, desregulación de la detección de nutrientes, disfunción mitocondrial, macroautofagia disminuida, senescencia celular, agotamiento de células madre, comunicación intercelular alterada, inflamación crónica y disbiosis.
La pérdida de proteostasis es simultáneamente causa, consecuencia y amplificador de otros mecanismos del envejecimiento.
Integración definitiva con el Modelo IXUGEN®
Dentro del Modelo IXUGEN®, la proteostasis se incorpora como uno de los pilares centrales de la Reserva Molecular.
Esta reserva comprende la capacidad para preservar estabilidad genómica, regulación epigenética, calidad proteica, reparación y renovación molecular.
La proteostasis depende del resto del sistema: Reserva Metabólica, Reserva Inmunológica, Reserva Regenerativa y Reserva Funcional.
La Resiliencia Biológica emerge de la capacidad integrada de estas reservas para absorber perturbaciones y recuperar la homeostasis.
Proteostasis no equivale simplemente a “proteínas sanas”. Representa la capacidad del organismo para mantener un proteoma funcional frente al estrés continuo de la vida.
Mito
“La pérdida de proteostasis significa simplemente acumular proteínas viejas.”
Realidad
Implica una alteración de toda la red de síntesis, plegamiento, vigilancia, reparación, degradación y reciclaje.
Mito
“El envejecimiento proteico puede evaluarse con un único biomarcador.”
Realidad
La proteostasis es una propiedad dinámica y distribuida entre tejidos; actualmente no existe un marcador único validado de proteostasis sistémica.
Mito
“Los agregados siempre deben eliminarse.”
Realidad
La respuesta depende del tipo de agregado y del contexto. Algunas formas de secuestro pueden desempeñar funciones protectoras temporales.
Mito
“Más síntesis proteica significa mejor calidad proteica.”
Realidad
La calidad depende del equilibrio entre síntesis, plegamiento y degradación.
Mito
“Un suplemento puede restaurar globalmente la proteostasis.”
Realidad
No existe actualmente evidencia clínica suficiente para afirmar que un suplemento aislado restaure la red proteostática humana de forma global.
La proteostasis revela uno de los principios más profundos del envejecimiento: la longevidad celular no depende de evitar completamente el daño, sino de conservar suficiente capacidad para detectarlo, corregirlo y reemplazar los componentes que ya no pueden recuperarse. Cuando la carga molecular aumenta al mismo tiempo que disminuye la Reserva Proteostática, el organismo pierde margen de adaptación. La distancia entre la carga de estrés y la capacidad de respuesta constituye una expresión fundamental de la Resiliencia Biológica.
- La proteostasis regula todo el ciclo de vida de las proteínas.
- El proteoma es dinámico y se renueva continuamente.
- Síntesis excesiva también puede generar estrés proteostático.
- La calidad proteica depende del equilibrio entre producción y eliminación.
- Chaperonas, proteasoma, autofagia y lisosomas constituyen sistemas complementarios.
- El daño proteico aumenta con oxidación, glicación, inflamación y estrés metabólico.
- La pérdida de proteostasis es heterogénea entre tejidos.
- Las neuronas presentan especial vulnerabilidad por su longevidad y complejidad.
- La calidad del proteoma influye sobre células madre y capacidad regenerativa.
- Actualmente no existe una prueba clínica única para cuantificar proteostasis sistémica.
- La Reserva Proteostática forma parte de la Reserva Molecular del Modelo IXUGEN®.
- La pérdida de proteostasis representa una reducción progresiva del margen de resiliencia.
- 1. El proteoma es el conjunto dinámico de proteínas presentes en un sistema biológico.
- 2. La red de proteostasis controla el ciclo completo de vida de esas proteínas.
- 3. La síntesis, plegamiento, mantenimiento, degradación y reciclaje forman una única red.
- 4. Una proteína puede perder función aun cuando su secuencia genética permanezca intacta.
- 5. Misfolding, oligomerización, agregación y toxicidad son conceptos relacionados, pero no equivalentes.
- 6. Las chaperonas protegen proteínas vulnerables y facilitan refolding.
- 7. El sistema ubiquitina-proteasoma permite degradación selectiva.
- 8. Autofagia y lisosomas eliminan cargas que exceden las capacidades del proteasoma.
- 9. El envejecimiento incrementa la carga proteotóxica y puede disminuir la reserva de respuesta.
- 10. Proteostasis, mitocondrias, redox, metabolismo, inflamación, autofagia y senescencia forman una red integrada.
- 11. La pérdida de proteostasis constituye un Hallmark fundamental del envejecimiento.
- 12. Dentro del Modelo IXUGEN®, la calidad del proteoma forma parte esencial de la Reserva Molecular y de la Resiliencia Biológica.
Bibliografía seleccionada del Capítulo I
Fundamentos del plegamiento proteico
- Anfinsen CB. Principles that Govern the Folding of Protein Chains.
- Levinthal C. Trabajos conceptuales sobre la paradoja del plegamiento.
- Dill KA, MacCallum JL. Estudios y revisiones sobre los principios físicos del plegamiento proteico.
- Hartl FU, Bracher A, Hayer-Hartl M. Revisiones fundamentales sobre plegamiento molecular y chaperonas.
Proteostasis
- Balch WE, Morimoto RI, Dillin A, Kelly JW. Trabajos fundacionales sobre adaptación de proteostasis.
- Powers ET, Morimoto RI, Dillin A, Kelly JW, Balch WE. Estudios fundamentales de la red de proteostasis.
- Labbadia J, Morimoto RI. Revisiones sobre proteostasis y envejecimiento.
- Hipp MS, Kasturi P, Hartl FU. Revisiones sobre la red de control de calidad proteico.
Envejecimiento
- López-Otín C, et al. The Hallmarks of Aging.
- López-Otín C, et al. Hallmarks of Aging: An Expanding Universe.
- Ben-Zvi A, Miller EA, Morimoto RI. Investigaciones sobre deterioro temprano de proteostasis asociado con la edad.
Ubiquitina-proteasoma
- Hershko A, Ciechanover A. Trabajos fundacionales del sistema ubiquitina.
- Finley D. Revisiones sobre proteasoma y control de calidad proteico.
- Vilchez D, Saez I, Dillin A. Estudios sobre proteostasis y envejecimiento.
Autofagia y degradación lisosomal
- Mizushima N.
- Levine B.
- Cuervo AM.
- Dikic I, Elazar Z.
Daño proteico y agregación
- Dobson CM. Revisiones fundamentales sobre misfolding y agregación.
- Chiti F, Dobson CM. Estudios sobre mecanismos de agregación proteica y enfermedad.
- Knowles TPJ, Vendruscolo M, Dobson CM. Revisiones sobre amiloides y agregación.
Revistas prioritarias para actualización
- Nature.
- Cell.
- Science.
- Nature Aging.
- Nature Reviews Molecular Cell Biology.
- Molecular Cell.
- Cell Metabolism.
- Nature Chemical Biology.
- EMBO Journal.
- Aging Cell.
Conclusión del Capítulo I
La proteostasis constituye uno de los sistemas fundamentales que permiten mantener la vida celular.
El proteoma humano está sometido continuamente a síntesis, modificación, daño y renovación. Para conservar su funcionalidad, la célula necesita controlar cada una de estas etapas mediante una red integrada que incluye chaperonas, sistemas degradativos, mecanismos de respuesta al estrés y procesos de reciclaje.
El plegamiento proteico representa únicamente una parte de este sistema.
Una proteína debe no solo adquirir una estructura funcional, sino conservarla dentro de un ambiente celular dinámico, reparar daños cuando sea posible y ser eliminada cuando su recuperación deje de ser viable.
Durante el envejecimiento, la carga proteotóxica puede aumentar simultáneamente con una reducción progresiva de la capacidad de respuesta. Como consecuencia, disminuye la Reserva Proteostática, estrechándose el margen entre homeostasis y disfunción.
Este fenómeno conecta la pérdida de proteostasis con disfunción mitocondrial, alteraciones redox, disminución de autofagia, inflammaging, senescencia celular, agotamiento de células madre y deterioro funcional.
Desde la perspectiva del Modelo IXUGEN®, la proteostasis constituye uno de los componentes centrales de la Reserva Molecular y, por tanto, uno de los determinantes fundamentales de la Resiliencia Biológica.
El Capítulo I establece así el fundamento conceptual del CÓDICE 009 y prepara el avance hacia el Capítulo II - La Red Molecular de Proteostasis, donde chaperonas moleculares, Heat Shock Response, HSF1, ubiquitina, proteasoma, autofagia, agrefagia, autofagia mediada por chaperonas y lisosoma serán analizados como una única red molecular integrada.
Contenido educativo de la Biblioteca Científica AETERNUM® de IXUGEN®. No sustituye la valoración médica individual ni debe utilizarse para autodiagnóstico o tratamiento.