Índice del capítulo ▾
Introducción
El Capítulo I estableció un principio fundamental: una proteína no se encuentra protegida únicamente en el momento de su síntesis. Desde que emerge del ribosoma hasta que finalmente es degradada, atraviesa una existencia molecular sometida continuamente a fluctuaciones térmicas, oxidativas, metabólicas y mecánicas capaces de modificar su conformación.
La célula necesita, por tanto, una infraestructura permanente de vigilancia.
Esta infraestructura no está constituida por un único mecanismo. Es una red molecular de proteostasis en la que diferentes sistemas reconocen proteínas vulnerables, facilitan su plegamiento, evitan interacciones aberrantes, intentan recuperar proteínas parcialmente alteradas y, cuando la reparación deja de ser viable, coordinan su eliminación.
Tres grandes brazos de esta red dominarán el presente capítulo:
chaperonas moleculares → sistema ubiquitina-proteasoma → autofagia-lisosoma.
Pero esta representación lineal es deliberadamente simplificada.
En realidad, estos sistemas intercambian información continuamente. Una proteína reconocida inicialmente por una chaperona puede recuperar su estructura, ser transferida al proteasoma o terminar eliminada mediante autofagia. El destino depende del tipo de proteína, magnitud del daño, localización celular y capacidad proteostática disponible.
El primer nivel de defensa corresponde a las chaperonas moleculares.
Su importancia deriva de una característica fundamental del proteoma: muchas proteínas atraviesan estados conformacionales vulnerables incluso durante la fisiología normal.
Las chaperonas permiten que esa vulnerabilidad no se transforme automáticamente en agregación.
1. El problema fundamental que resuelven las chaperonas
El ambiente intracelular está extraordinariamente concentrado.
El citoplasma contiene proteínas, ARN, metabolitos, membranas, complejos macromoleculares y estructuras del citoesqueleto ocupando una proporción importante del espacio disponible.
Esta condición, conocida como macromolecular crowding, modifica el comportamiento de las proteínas.
Una cadena polipeptídica recién sintetizada puede exponer temporalmente regiones hidrofóbicas que posteriormente quedarán enterradas dentro de su estructura tridimensional.
Mientras permanecen expuestas, estas regiones pueden interactuar con superficies similares de otras proteínas.
El resultado potencial es:
interacción inapropiada → oligomerización → agregación.
Las chaperonas moleculares reducen este riesgo.
Reconocen determinados estados conformacionales vulnerables y los mantienen temporalmente protegidos mientras la proteína completa su plegamiento o recupera una conformación funcional.
Por ello, su función esencial no consiste en “construir” la proteína.
Consiste en administrar su vulnerabilidad conformacional.
2. ¿Qué es una chaperona molecular?
Una chaperona molecular es una proteína que interactúa transitoriamente con otras proteínas para facilitar su plegamiento, estabilidad, ensamblaje, transporte o destino proteostático sin formar necesariamente parte de la estructura final del producto funcional.
Este concepto incluye diferentes actividades.
Una chaperona puede:
- proteger una cadena naciente;
- estabilizar intermediarios de plegamiento;
- evitar agregación;
- facilitar refolding;
- ayudar al ensamblaje de complejos;
- participar en transporte intracelular;
- mantener proteínas temporalmente inactivas;
- colaborar en su degradación.
No todas las chaperonas realizan todas estas funciones.
La red contiene familias especializadas.
3. Las chaperonas no contienen un "molde" de la proteína
Es importante evitar una interpretación incorrecta.
Las chaperonas no poseen una plantilla tridimensional que indique a cada proteína cómo debe plegarse.
La información estructural fundamental reside en la propia secuencia de aminoácidos y en las propiedades fisicoquímicas del sistema.
La función de la chaperona consiste principalmente en modificar el entorno cinético del plegamiento.
Puede:
- impedir asociaciones prematuras;
- estabilizar intermediarios;
- proporcionar espacios protegidos;
- facilitar ciclos repetidos de unión y liberación.
En términos conceptuales:
las chaperonas no determinan la identidad estructural de una proteína; aumentan la probabilidad de que alcance un estado funcional sin quedar atrapada en rutas aberrantes.
4. Chaperonas constitutivas y chaperonas inducibles
Algunas chaperonas se expresan de manera constitutiva porque la célula necesita permanentemente su actividad.
Otras aumentan significativamente frente a condiciones de estrés.
Entre los estímulos capaces de modificar la expresión de chaperonas se encuentran:
- calor;
- estrés oxidativo;
- hipoxia;
- inflamación;
- metales;
- toxinas;
- ejercicio;
- alteraciones metabólicas;
- acumulación de proteínas mal plegadas.
Esta capacidad permite adaptar la red proteostática a cambios en la demanda.
La célula no mantiene siempre todos sus mecanismos defensivos en máxima actividad.
Los amplifica cuando resulta necesario.
5. Heat Shock Proteins
Muchas de las chaperonas mejor estudiadas pertenecen a las familias de Heat Shock Proteins (HSP).
Su nombre deriva de experimentos históricos que demostraron que el aumento de temperatura inducía rápidamente la expresión de determinadas proteínas.
Posteriormente se descubrió que la respuesta no era exclusiva del calor.
Las HSP participan en una respuesta mucho más amplia frente al estrés proteotóxico.
Las principales familias se clasifican tradicionalmente según su masa molecular aproximada e incluyen:
- HSP100;
- HSP90;
- HSP70;
- HSP60;
- HSP40;
- pequeñas HSP.
Estas familias forman una red cooperativa.
6. HSP70: uno de los centros de la proteostasis
La familia HSP70 constituye uno de los sistemas de chaperonas más conservados de la evolución.
Sus miembros participan en:
- plegamiento cotraduccional;
- recuperación de proteínas desplegadas;
- transporte hacia organelos;
- prevención de agregación;
- selección de proteínas para degradación.
HSP70 reconoce preferentemente segmentos hidrofóbicos que normalmente deberían encontrarse ocultos dentro de una proteína correctamente plegada.
La exposición de estas regiones funciona como una señal de vulnerabilidad conformacional.
7. El ciclo ATPasa de HSP70
HSP70 funciona mediante ciclos regulados por nucleótidos.
De forma simplificada existen dos estados principales.
Cuando HSP70 se encuentra unida a ATP presenta una conformación relativamente abierta y una interacción más dinámica con los sustratos.
La hidrólisis:
ATP → ADP
favorece un estado de mayor afinidad por la proteína cliente.
Posteriormente, el intercambio de ADP por ATP facilita la liberación del sustrato.
El ciclo puede repetirse:
captura → estabilización → liberación → nuevo intento de plegamiento.
Este mecanismo demuestra algo fundamental:
la proteostasis consume energía.
Mantener proteínas funcionales no es un proceso pasivo.
8. HSP40/DNAJ: reconocimiento y dirección
Las proteínas de la familia HSP40, también conocidas como DNAJ, funcionan frecuentemente como cochaperonas de HSP70.
Pueden reconocer proteínas vulnerables y estimular la actividad ATPasa de HSP70.
De esta manera ayudan a determinar:
- qué proteína debe ser capturada;
- dónde debe actuar HSP70;
- cuánto tiempo debe permanecer unido el complejo.
La existencia de numerosas proteínas DNAJ aporta gran diversidad funcional al sistema HSP70.
Esto permite adaptar un mecanismo general de chaperonaje a diferentes tipos celulares y compartimentos.
9. Factores de intercambio de nucleótidos
Para completar el ciclo de HSP70, el ADP debe ser reemplazado por ATP.
Este proceso es facilitado por nucleotide exchange factors.
El sistema funcional incluye entonces:
HSP70 + DNAJ + factores de intercambio de nucleótidos + proteína cliente.
Este ejemplo ilustra una característica que se repetirá a lo largo del capítulo:
las unidades funcionales de proteostasis suelen ser redes multiproteicas, no moléculas aisladas.
10. HSP90: estabilización de proteínas reguladoras
HSP90 representa otro nodo central.
A diferencia de HSP70, que interactúa ampliamente con proteínas desplegadas o recién sintetizadas, HSP90 participa de manera importante en la maduración y estabilidad de numerosas proteínas reguladoras.
Entre sus clientes se encuentran:
- quinasas;
- receptores esteroideos;
- factores de transcripción;
- proteínas de señalización.
Estas proteínas controlan redes celulares completas.
Por ello, modificar HSP90 puede producir consecuencias muy amplias.
11. HSP90 como estabilizador de estados conformacionales
Muchas proteínas cliente de HSP90 poseen estructuras dinámicas o relativamente inestables.
HSP90 puede ayudar a conservarlas en conformaciones compatibles con su función.
Este fenómeno tiene una consecuencia importante.
La red de chaperonas no solo protege proteínas frente al daño.
También participa en la regulación normal de la señalización celular.
Proteostasis y señalización no son sistemas separados.
12. Cochaperonas de HSP90
HSP90 trabaja con numerosas cochaperonas.
Estas regulan:
- unión a clientes;
- actividad ATPasa;
- ensamblaje de complejos;
- selección de proteínas.
La composición del complejo puede variar dependiendo del cliente y del estado celular.
Por ello, hablar simplemente de “actividad HSP90” oculta una enorme diversidad molecular.
13. HSP70 y HSP90 trabajan juntas
Los sistemas HSP70 y HSP90 pueden funcionar secuencialmente.
Una proteína vulnerable puede ser reconocida inicialmente por HSP70.
Posteriormente, determinadas proteínas cliente pueden transferirse hacia HSP90 para completar su maduración.
Puede representarse:
proteína vulnerable → HSP70 → intermediarios/cochaperonas → HSP90 → proteína funcional.
Este flujo demuestra nuevamente que la proteostasis es una red.
14. HSP60 y chaperoninas mitocondriales
Las mitocondrias necesitan mantener su propio proteoma funcional.
Muchas proteínas mitocondriales son sintetizadas en el citoplasma e importadas posteriormente hacia el organelo.
Durante el transporte deben permanecer en estados compatibles con la importación y posteriormente plegarse correctamente.
Dentro de la mitocondria, HSP60 y otros sistemas de chaperonas contribuyen al plegamiento.
Esto conecta directamente:
proteostasis ↔︎ función mitocondrial.
15. Chaperoninas
Las chaperoninas son complejos moleculares capaces de proporcionar un ambiente protegido donde determinadas proteínas pueden plegarse.
Su arquitectura puede imaginarse como una cámara molecular.
La proteína entra temporalmente en un espacio donde queda protegida de interacciones inapropiadas con el ambiente celular.
Durante este periodo puede explorar nuevas conformaciones.
Posteriormente es liberada.
Si ha alcanzado un estado adecuado, continúa su vida funcional.
Si no, puede requerir nuevos ciclos o ser destinada a degradación.
16. TRiC/CCT
En el citosol eucariota, una de las principales chaperoninas es el complejo TRiC/CCT.
Participa en el plegamiento de proteínas importantes como:
- actina;
- tubulina;
- diferentes proteínas reguladoras.
Su función resulta especialmente relevante porque actina y tubulina constituyen componentes fundamentales del citoesqueleto.
Por tanto, el control proteostático afecta directamente:
- arquitectura celular;
- transporte;
- división;
- movilidad.
17. Small Heat Shock Proteins
Las small Heat Shock Proteins (sHSP) forman otra familia importante.
A diferencia de sistemas como HSP70, muchas pequeñas HSP pueden actuar sin consumir ATP directamente durante la captura inicial de proteínas.
Funcionan como holdases.
Es decir, pueden mantener proteínas parcialmente desplegadas en estados solubles o menos propensos a agregarse.
Posteriormente, otros sistemas pueden intentar recuperar esas proteínas.
Su función puede conceptualizarse como:
contener primero → reparar después.
18. La contención como estrategia biológica
No todos los problemas pueden resolverse inmediatamente.
Cuando el estrés es intenso, la célula puede encontrarse temporalmente incapaz de refoldar todas las proteínas alteradas.
En estas circunstancias, impedir que se agreguen puede ser suficiente para ganar tiempo.
Esta estrategia resulta especialmente importante durante:
- estrés térmico;
- estrés oxidativo;
- alteraciones metabólicas agudas.
La proteostasis posee así una dimensión temporal.
No solo importa qué hacer, sino cuándo hacerlo.
19. Heat Shock Response
Cuando la cantidad de proteínas desplegadas aumenta, la célula puede activar un programa transcripcional denominado Heat Shock Response (HSR).
Su objetivo es aumentar rápidamente la capacidad proteostática.
El principal regulador de esta respuesta en células animales es:
HSF1
Heat Shock Factor 1
HSF1 funciona como un sensor-integrador de estrés proteotóxico.
20. HSF1 en condiciones basales
En condiciones normales, la actividad de HSF1 se encuentra cuidadosamente regulada.
Cuando aumenta la carga de proteínas alteradas, la disponibilidad y las interacciones de diferentes componentes de la red de chaperonas cambian.
Esto favorece la activación de HSF1 mediante mecanismos que incluyen:
- cambios conformacionales;
- trimerización;
- modificaciones postraduccionales;
- unión al ADN.
HSF1 reconoce secuencias denominadas Heat Shock Elements (HSE) presentes en regiones reguladoras de genes de respuesta al estrés.
21. Activación de la Heat Shock Response
La secuencia funcional puede resumirse:
estrés proteotóxico
↓
proteínas desplegadas/mal plegadas ↑
↓
activación de HSF1
↓
expresión de genes de respuesta al estrés
↓
HSP y componentes proteostáticos ↑
↓
capacidad de control de calidad ↑
El objetivo final es recuperar homeostasis.
22. Una respuesta adaptativa, no una señal de enfermedad
La activación de HSF1 no significa necesariamente que exista una enfermedad.
Puede aparecer fisiológicamente durante desafíos transitorios.
La respuesta constituye un mecanismo adaptativo.
El problema surge cuando:
- la carga de estrés es demasiado intensa;
- persiste durante demasiado tiempo;
- la capacidad de respuesta es insuficiente;
- la señal no puede resolverse.
Esta distinción entre adaptación aguda y estrés crónico será fundamental a lo largo del CÓDICE 009.
23. Estrés térmico
El aumento de temperatura puede desestabilizar interacciones no covalentes responsables de mantener estructuras proteicas.
Como consecuencia aumenta la exposición de regiones hidrofóbicas y el riesgo de agregación.
La Heat Shock Response incrementa la capacidad de la célula para:
- estabilizar proteínas;
- prevenir agregación;
- facilitar recuperación.
Este mecanismo explica el origen histórico del término Heat Shock Protein.
24. Ejercicio y respuesta proteostática
El ejercicio constituye un estrés fisiológico complejo.
Puede producir transitoriamente:
- aumento de temperatura;
- cambios redox;
- cambios metabólicos;
- tensión mecánica;
- aumento de demanda energética.
Estos estímulos activan mecanismos adaptativos que incluyen, dependiendo del tejido y tipo de ejercicio:
- chaperonas;
- antioxidantes;
- autofagia;
- biogénesis mitocondrial.
Por ello, parte de los beneficios del ejercicio puede interpretarse dentro del concepto de hormesis.
25. Hormesis proteostática
La hormesis describe una respuesta adaptativa beneficiosa frente a un estrés moderado.
En proteostasis:
estrés moderado y transitorio
puede inducir:
respuesta defensiva mayor que la requerida inmediatamente
generando temporalmente una capacidad aumentada para manejar futuros desafíos.
Este fenómeno contribuye al concepto de reserva adaptativa.
26. El principio dosis-respuesta
Sin embargo, la hormesis no significa que más estrés sea mejor.
Existe una relación dependiente de:
- intensidad;
- duración;
- frecuencia;
- edad;
- estado funcional;
- enfermedad.
Un estímulo que activa adaptación en un individuo sano puede superar la capacidad de respuesta en una persona frágil.
Por ello, la hormesis debe interpretarse dentro del contexto de resiliencia biológica individual.
27. HSF1 y metabolismo
HSF1 interactúa con múltiples programas metabólicos.
La respuesta al estrés requiere:
- ATP;
- regulación de traducción;
- disponibilidad de aminoácidos;
- función mitocondrial.
Por tanto, una célula con deterioro metabólico puede presentar menor capacidad para ejecutar una respuesta proteostática eficiente.
Esto conecta:
Reserva Metabólica ↔︎ Reserva Proteostática.
28. HSF1 e inflamación
HSF1 también interactúa con vías inflamatorias.
Las chaperonas y respuestas al estrés pueden modular:
- NF-κB;
- señalización de citocinas;
- supervivencia celular.
A su vez, la inflamación crónica puede aumentar la carga proteotóxica.
La relación es bidireccional:
proteostasis ↔︎ inflamación.
29. HSF1 y cáncer: una paradoja biológica
La capacidad proteostática elevada no siempre es beneficiosa para el organismo.
Las células tumorales enfrentan enormes presiones:
- mutaciones;
- aneuploidía;
- elevada síntesis proteica;
- hipoxia;
- estrés metabólico.
Para sobrevivir necesitan sistemas de proteostasis robustos.
En distintos cánceres, HSF1 y chaperonas como HSP90 pueden contribuir a mantener proteínas oncogénicas funcionales.
Esto genera una paradoja:
los mismos mecanismos que protegen una célula normal frente al estrés pueden ser utilizados por una célula tumoral para sobrevivir.
Este principio impide interpretar la activación indiscriminada de chaperonas como una estrategia universal de longevidad.
30. Chaperonas y apoptosis
Cuando el daño es todavía recuperable, las chaperonas favorecen supervivencia.
Pero si la carga proteotóxica supera persistentemente la capacidad de reparación, la célula puede activar:
- senescencia;
- apoptosis;
- otras respuestas de estrés.
La proteostasis se integra así con mecanismos de control de calidad a nivel celular completo.
Si no puede conservarse la calidad molecular, el organismo puede optar por detener o eliminar la célula.
31. Chaperonas y senescencia
La relación entre proteostasis y senescencia es compleja.
La acumulación persistente de estrés puede favorecer vías asociadas con senescencia.
Una vez establecida, la célula senescente experimenta importantes cambios:
- metabólicos;
- lisosomales;
- inflamatorios;
- secretorios.
Como se desarrolló en el CÓDICE 008, el SASP puede modificar el microambiente y aumentar la presión de estrés sobre células vecinas.
Así:
proteotoxicidad → senescencia → SASP → inflammaging → nueva presión proteotóxica.
32. Chaperonas y células madre
Las células madre deben conservar su proteoma durante periodos prolongados sin perder:
- identidad;
- capacidad de autorrenovación;
- potencial de diferenciación.
Para ello dependen de una regulación estricta de:
- síntesis;
- chaperonas;
- autofagia;
- metabolismo;
- mitocondrias.
Una reducción de la capacidad proteostática puede contribuir al deterioro de la Reserva Regenerativa.
33. Chaperonas y neurobiología
El sistema nervioso depende especialmente de redes eficientes de chaperonas.
Proteínas como:
- tau;
- α-sinucleína;
- TDP-43;
- huntingtina;
pueden adquirir estados conformacionales asociados con agregación.
Las chaperonas pueden interactuar con diferentes etapas de estos procesos.
Sin embargo, esto no significa que simplemente aumentar una HSP específica pueda prevenir o tratar una enfermedad neurodegenerativa.
La red es considerablemente más compleja.
34. Proteostasis celular y proteostasis del organismo
Durante mucho tiempo se estudió la proteostasis como una propiedad exclusivamente intracelular.
Hoy se reconoce que existen mecanismos de coordinación entre tejidos.
Señales:
- neuronales;
- endocrinas;
- inmunológicas;
- metabólicas;
pueden modificar respuestas de estrés en órganos distantes.
Esto introduce el concepto de proteostasis no autónoma de la célula.
35. Sistema nervioso como coordinador de respuestas de estrés
Modelos experimentales, especialmente en organismos como Caenorhabditis elegans, han mostrado que circuitos neuronales pueden regular respuestas proteostáticas en otros tejidos.
Estos descubrimientos han cambiado la interpretación de la proteostasis.
La calidad del proteoma no depende exclusivamente de decisiones internas de cada célula.
Puede formar parte de programas coordinados a nivel del organismo.
La extrapolación directa hacia humanos requiere prudencia, pero el principio biológico resulta importante.
36. Proteostasis y envejecimiento
Con el envejecimiento puede disminuir la capacidad para activar determinadas respuestas de estrés.
En diversos modelos se ha observado deterioro de:
- HSR;
- respuesta de chaperonas;
- adaptación frente a estrés proteotóxico.
Sin embargo, la magnitud y naturaleza de estos cambios varían según:
- tejido;
- especie;
- sexo;
- estado metabólico;
- tipo de estrés.
No debe afirmarse que todas las HSP simplemente disminuyen con la edad.
El fenómeno es una remodelación de la respuesta proteostática.
37. Pérdida de inducibilidad
Un concepto particularmente importante es la pérdida de inducibilidad.
Una célula puede mantener concentraciones basales relativamente adecuadas de determinadas chaperonas, pero perder la capacidad para incrementarlas rápidamente cuando aparece estrés.
Esto significa que una medición basal normal no necesariamente implica una respuesta proteostática intacta.
La función depende también de la capacidad dinámica de respuesta.
38. Reserva de respuesta
Este principio puede incorporarse al concepto desarrollado en el Capítulo I:
Reserva Proteostática
La reserva no representa únicamente cuánto sistema de control de calidad existe en reposo.
Incluye cuánto puede aumentar cuando aparece un desafío.
Por ello:
Reserva Proteostática = capacidad basal + capacidad inducible − carga proteotóxica.
Nuevamente, esta expresión es conceptual, no una fórmula clínica validada.
39. De la chaperona a la degradación
Las chaperonas no siempre consiguen recuperar la proteína.
Cuando los intentos de refolding fracasan, deben colaborar con mecanismos degradativos.
Aquí aparece una transición crítica:
folding → refolding → triage → degradación.
Diversas cochaperonas ayudan a determinar este cambio.
Una de las más relevantes es CHIP.
40. CHIP: puente entre chaperonas y ubiquitina
CHIP — C-terminus of Hsc70-interacting protein, también conocida como STUB1, puede interactuar con HSP70 y HSP90.
Además, posee actividad E3 ubiquitina ligasa.
Esto le permite conectar:
reconocimiento por chaperona
con:
ubiquitinación
y potencialmente:
degradación proteasomal.
CHIP representa un ejemplo extraordinario de cómo la célula integra reparación y eliminación dentro de una misma red.
41. El principio del triage molecular
Puede representarse de manera simplificada:
Proteína vulnerable
↓
Chaperona
↙︎ ↘︎
Refolding Daño persistente
↓ ↓
Función Ubiquitinación
↓
Degradación
Esta decisión constituye uno de los puntos centrales de la proteostasis.
42. No existe una frontera rígida entre plegamiento y degradación
Tradicionalmente, chaperonas y sistemas degradativos se estudiaron como mecanismos independientes.
La biología moderna muestra una realidad diferente.
Las mismas proteínas pueden participar en:
- reconocimiento;
- estabilización;
- transporte;
- ubiquitinación;
- degradación.
Por ello, la pregunta no debe ser:
“¿qué sistema controla esta proteína?”
sino:
“¿cómo se coordina la red para decidir su destino?”
43. Integración con los Hallmarks del Envejecimiento
La red de chaperonas conecta directamente con múltiples Hallmarks.
Pérdida de proteostasis
Constituye su relación principal y directa.
Disfunción mitocondrial
Las mitocondrias necesitan chaperonas propias y proporcionan ATP para los ciclos de plegamiento.
Alteraciones epigenéticas
La expresión de HSP y HSF1 está sometida a regulación transcripcional y epigenética.
Desregulación de nutrient sensing
mTOR, AMPK y vías metabólicas modifican síntesis y demanda proteostática.
Macroautofagia disminuida
Las proteínas que no pueden recuperarse mediante chaperonas pueden necesitar degradación autofágica.
Senescencia celular
El estrés proteotóxico persistente puede contribuir a respuestas de senescencia.
Agotamiento de células madre
Una proteostasis deficiente compromete mantenimiento y capacidad regenerativa.
Inflamación crónica
Inflammaging aumenta la presión molecular y puede modificar respuestas de estrés.
Comunicación intercelular alterada
La respuesta proteostática puede coordinarse entre tejidos mediante señales sistémicas.
44. Integración con los CÓDICES anteriores
La red de chaperonas constituye un punto de convergencia entre los mecanismos ya desarrollados en AETERNUM®.
CÓDICE 003 — Epigenética: regula la capacidad de expresar programas proteostáticos.
CÓDICE 004 — Inflammaging: aumenta la carga de estrés y modifica respuestas celulares.
CÓDICE 005 — Mitocondrias: proporciona energía y mantiene su propia proteostasis especializada.
CÓDICE 006 — Homeostasis Redox: determina una parte importante del daño químico sobre proteínas.
CÓDICE 007 — Autofagia: elimina proteínas y estructuras que no pueden recuperarse.
CÓDICE 008 — Senescencia: representa una posible consecuencia del estrés persistente y una fuente secundaria de presión inflamatoria.
El CÓDICE 009 comienza a mostrar cómo estos sistemas convergen sobre una pregunta común:
¿puede la célula conservar suficiente calidad molecular para continuar funcionando?
45. Integración con el Modelo IXUGEN®
Dentro del Modelo IXUGEN® de Longevidad Saludable, las chaperonas representan un componente de la Reserva Molecular, pero su funcionamiento depende de todo el organismo.
La respuesta proteostática requiere:
Reserva Metabólica
para disponer de energía y sustratos.
Reserva Inmunológica
para evitar una presión inflamatoria excesiva.
Reserva Regenerativa
para reemplazar células cuyo daño excede la capacidad de reparación.
Reserva Funcional
para traducir la integridad molecular en desempeño tisular.
Así, la respuesta de chaperonas constituye un ejemplo molecular del principio general de IXUGEN®:
la salud biológica depende no solo del daño existente, sino de la capacidad para responder a él.
Aplicaciones Clínicas
Las Heat Shock Proteins poseen gran interés como:
- biomarcadores experimentales;
- posibles objetivos farmacológicos;
- indicadores de respuesta al estrés;
- mecanismos implicados en cáncer y neurodegeneración.
Sin embargo, su utilización clínica en longevidad continúa siendo limitada.
No existe actualmente una prueba rutinaria validada que permita medir de forma integral la “capacidad de chaperonas” de un individuo.
Tampoco existe evidencia suficiente para recomendar intervenciones destinadas simplemente a aumentar HSP de manera indiscriminada.
La razón es biológica:
una respuesta proteostática elevada puede ser beneficiosa en algunos contextos y perjudicial en otros.
El cáncer constituye el ejemplo más importante.
Mito
“Las chaperonas le indican a una proteína exactamente cómo debe plegarse.”
Realidad
La información estructural fundamental reside en la secuencia proteica. Las chaperonas reducen rutas aberrantes y favorecen oportunidades de plegamiento correcto.
Mito
“Las Heat Shock Proteins aparecen únicamente cuando aumenta la temperatura.”
Realidad
Responden a múltiples formas de estrés proteotóxico, metabólico y oxidativo.
Mito
“Aumentar HSP siempre sería beneficioso para la longevidad.”
Realidad
Una elevada capacidad proteostática también puede favorecer la supervivencia de células tumorales. La regulación debe ser contextual.
Mito
“Si las chaperonas no reparan una proteína, han fracasado.”
Realidad
Parte de su función consiste precisamente en reconocer cuándo una proteína debe ser transferida hacia degradación.
Mito
“La cantidad basal de una HSP permite conocer toda la capacidad proteostática.”
Realidad
La capacidad de inducir una respuesta frente al estrés puede ser tan importante como el nivel basal.
La verdadera reserva proteostática no consiste en mantener permanentemente elevados todos los sistemas defensivos. Consiste en conservar la capacidad de reconocer un desafío, amplificar temporalmente la respuesta necesaria y regresar posteriormente a la homeostasis. En este sentido, la Heat Shock Response representa un modelo molecular de Resiliencia Biológica: detectar, responder, resolver y recuperar.
- Las chaperonas administran la vulnerabilidad conformacional de las proteínas.
- HSP70 funciona mediante ciclos dependientes de ATP.
- HSP40/DNAJ aporta especificidad y regulación al sistema HSP70.
- HSP90 estabiliza numerosas proteínas reguladoras.
- HSP60 participa en proteostasis mitocondrial.
- Las pequeñas HSP pueden contener proteínas alteradas antes de su reparación.
- HSF1 constituye un regulador central de la Heat Shock Response.
- La inducibilidad de la respuesta puede disminuir con el envejecimiento.
- La hormesis depende de intensidad, duración y capacidad individual.
- Una mayor actividad de chaperonas no es universalmente beneficiosa.
- CHIP conecta directamente chaperonas y ubiquitinación.
- Plegamiento y degradación son partes continuas de una misma red.
Al finalizar esta primera parte del Capítulo II deben quedar establecidos los siguientes principios:
- Las chaperonas constituyen la primera gran línea de defensa del proteoma frente al misfolding.
- No determinan la estructura final de una proteína, sino que reducen rutas conformacionales aberrantes.
- HSP70, HSP90, HSP60, DNAJ y pequeñas HSP cumplen funciones complementarias.
- Muchos ciclos de chaperonaje requieren ATP.
- La Heat Shock Response permite aumentar temporalmente la capacidad proteostática.
- HSF1 constituye uno de sus reguladores centrales.
- El estrés moderado puede inducir adaptación, pero el estrés excesivo supera la reserva.
- La capacidad inducible puede ser más informativa que la concentración basal de una chaperona.
- Las chaperonas participan tanto en recuperación como en selección para degradación.
- CHIP constituye un puente molecular entre HSP70/HSP90 y el sistema ubiquitina-proteasoma.
- Proteostasis, metabolismo, mitocondrias, inflamación, autofagia y senescencia están profundamente conectados.
- La respuesta de chaperonas constituye una expresión molecular de la Resiliencia Biológica.
Introducción
La primera línea de defensa del proteoma intenta preservar la función. Las chaperonas estabilizan proteínas vulnerables, previenen interacciones aberrantes y facilitan nuevos intentos de plegamiento. Sin embargo, ningún sistema biológico puede reparar indefinidamente todas las moléculas dañadas.
Cuando una proteína ha perdido de manera persistente su conformación, ha sufrido modificaciones irreversibles o representa un riesgo para la homeostasis, la estrategia más segura puede ser eliminarla.
La célula necesita entonces resolver tres problemas:
- reconocer qué proteína debe ser destruida;
- distinguirla de millones de proteínas funcionales;
- degradarla de manera controlada sin comprometer el resto del proteoma.
El sistema ubiquitina–proteasoma (UPS) constituye una de las soluciones moleculares más sofisticadas para este problema.
Su función no se limita a eliminar proteínas dañadas. Participa también en la regulación del ciclo celular, señalización, respuesta inmunológica, reparación del ADN, control transcripcional y prácticamente todos los grandes programas celulares.
La degradación proteica es, por tanto, una forma de regulación.
La célula controla su biología no solo decidiendo qué proteínas producir, sino también qué proteínas eliminar y cuándo hacerlo.
1. La degradación como mecanismo de control
En una interpretación simplificada, podría suponerse que degradar proteínas representa únicamente un proceso de limpieza.
En realidad, constituye una herramienta regulatoria extraordinariamente precisa.
Muchas proteínas de señalización poseen vidas medias cortas.
Su degradación rápida permite apagar respuestas biológicas.
Entre ellas pueden encontrarse:
- factores de transcripción;
- reguladores del ciclo celular;
- proteínas de señalización;
- proteínas asociadas con inflamación;
- proteínas dañadas.
Por ello, la degradación selectiva influye directamente sobre la identidad funcional de una célula.
2. Ubiquitina: una pequeña proteína con enormes funciones
La ubiquitina es una proteína pequeña y altamente conservada.
Puede unirse covalentemente a otras proteínas.
Esta modificación recibe el nombre de ubiquitinación.
Aunque durante mucho tiempo se asoció principalmente con degradación proteasomal, actualmente se sabe que la ubiquitina funciona como un lenguaje molecular complejo.
Puede regular:
- degradación;
- tráfico;
- señalización;
- reparación del ADN;
- endocitosis;
- respuesta inmunológica.
El significado depende de cómo se encuentre organizada la señal de ubiquitina.
3. La cascada E1–E2–E3
La ubiquitinación se produce mediante una cascada enzimática altamente organizada.
Participan tres grandes clases de enzimas:
E1 → E2 → E3.
Cada nivel cumple una función distinta.
4. E1: activación de ubiquitina
Las enzimas E1 activan ubiquitina utilizando energía procedente de ATP.
La ubiquitina forma inicialmente un intermediario de alta energía con E1.
Posteriormente se transfiere hacia una enzima E2.
La necesidad de ATP demuestra nuevamente que el control de calidad proteico requiere inversión energética.
5. E2: enzimas conjugadoras
Las E2 ubiquitin-conjugating enzymes reciben la ubiquitina activada desde E1.
Posteriormente colaboran con E3 para transferirla a la proteína objetivo.
Existen múltiples E2 con funciones y preferencias distintas.
Sin embargo, la especificidad final del sustrato suele depender en gran medida de las E3.
6. E3: especificidad molecular
Las E3 ubiquitin ligases representan uno de los niveles más importantes del sistema.
Reconocen proteínas específicas y facilitan la transferencia de ubiquitina.
El organismo posee una enorme diversidad de E3.
Esto permite identificar proteínas según:
- secuencias específicas;
- modificaciones postraduccionales;
- estado conformacional;
- localización;
- asociación con otras proteínas.
Las E3 pueden interpretarse como parte del sistema de identificación molecular del proteoma.
7. Degrones
Las señales que favorecen el reconocimiento de una proteína para degradación se denominan frecuentemente degrones.
Un degrón puede consistir en:
- una secuencia de aminoácidos;
- una modificación postraduccional;
- una región expuesta tras daño;
- una conformación particular.
El degrón permite que el sistema distinga entre una proteína funcional y una proteína que debe retirarse.
8. Ubiquitinación mono y poliubiquitinación
Una proteína puede recibir:
- una única ubiquitina;
- varias ubiquitinas individuales;
- cadenas de poliubiquitina.
Estas configuraciones transmiten señales diferentes.
Por ello, no toda ubiquitinación conduce al proteasoma.
La arquitectura de la cadena determina gran parte del destino molecular.
9. Cadenas de ubiquitina
La ubiquitina contiene varios residuos capaces de formar enlaces con otras ubiquitinas.
Entre los más estudiados se encuentran:
- K48;
- K63;
- K11.
Las cadenas enlazadas mediante K48 se asocian clásicamente con degradación proteasomal.
Las cadenas K63 participan frecuentemente en:
- señalización;
- respuesta al daño;
- tráfico;
- autofagia.
La realidad es más compleja y existen cadenas mixtas y ramificadas.
Esto convierte a la ubiquitinación en un auténtico código molecular.
10. El código de ubiquitina
La información contenida en una señal de ubiquitina depende de:
- número de ubiquitinas;
- posición de los enlaces;
- ramificación;
- localización del sustrato;
- proteínas lectoras presentes.
Puede compararse con un lenguaje.
Una misma molécula, ubiquitina, puede comunicar instrucciones diferentes según la forma en que se organiza.
11. Desubiquitinación
Las señales de ubiquitina también pueden eliminarse.
Las deubiquitinases (DUBs) remueven ubiquitina de proteínas o cadenas.
Sus funciones incluyen:
- editar señales;
- rescatar proteínas;
- reciclar ubiquitina;
- regular degradación.
Por ello, la ubiquitinación es reversible y dinámica.
El destino de una proteína depende del equilibrio entre:
ubiquitinación ↔︎ desubiquitinación.
12. Proteasoma 26S
La principal maquinaria encargada de degradar muchas proteínas ubiquitinadas es el proteasoma 26S.
Se trata de un complejo macromolecular de gran tamaño compuesto fundamentalmente por:
- núcleo catalítico 20S;
- una o dos partículas reguladoras 19S.
El proteasoma no funciona como una proteasa libre inespecífica.
Posee mecanismos de selección, reconocimiento, preparación y degradación del sustrato.
13. Núcleo 20S
El proteasoma 20S forma una estructura cilíndrica organizada en anillos.
En su interior se encuentran los sitios catalíticos responsables de la proteólisis.
La arquitectura protege al citoplasma de una degradación indiscriminada.
Las proteínas deben ser dirigidas hacia el interior del complejo para ser destruidas.
Esto convierte al proteasoma en una cámara proteolítica controlada.
14. Partícula reguladora 19S
La partícula 19S reconoce muchas proteínas poliubiquitinadas.
Sus funciones incluyen:
- reconocimiento de ubiquitina;
- remoción y reciclaje de ubiquitina;
- desplegamiento del sustrato;
- apertura de la entrada al 20S;
- translocación de la proteína.
Gran parte de estas funciones requieren ATP.
Por ello:
degradación selectiva = reconocimiento + energía + proteólisis.
15. El problema del desplegamiento previo
Una proteína correctamente plegada puede ser demasiado grande o estructuralmente compleja para atravesar directamente el canal del proteasoma.
Por ello, el sistema necesita desplegarla.
Las ATPasas de la partícula 19S proporcionan fuerza mecánica para:
- desenrollar la proteína;
- introducirla progresivamente en el núcleo 20S.
Esta observación muestra que la degradación proteica implica una auténtica manipulación mecánica molecular.
16. Proteólisis dentro del proteasoma
Una vez dentro del núcleo catalítico, la proteína se fragmenta en péptidos.
Posteriormente, otras peptidasas pueden convertirlos en aminoácidos.
Estos aminoácidos pueden:
- reutilizarse en síntesis;
- incorporarse al metabolismo;
- participar en otras rutas celulares.
Así se completa otro ciclo de economía molecular:
proteína → péptidos → aminoácidos → nueva síntesis.
17. Proteasoma 20S y estrés oxidativo
El proteasoma 20S puede participar en la degradación de determinadas proteínas oxidadas sin necesidad de la vía clásica de poliubiquitinación y 26S.
Durante estrés oxidativo, algunas proteínas pierden estructura y exponen regiones hidrofóbicas.
Esto puede favorecer su reconocimiento por mecanismos alternativos.
La interacción entre 20S y daño oxidativo resulta especialmente relevante para el envejecimiento.
18. Inmunoproteasoma
El sistema inmunológico posee una forma especializada denominada inmunoproteasoma.
Su expresión aumenta en respuesta a determinadas citocinas, especialmente interferones.
El inmunoproteasoma modifica el procesamiento proteico y contribuye a generar péptidos que pueden presentarse mediante MHC clase I.
Esta función conecta:
proteostasis ↔︎ inmunidad adaptativa.
19. Proteasoma y presentación antigénica
Parte de las proteínas intracelulares degradadas genera péptidos que pueden ser utilizados para vigilancia inmunológica.
Estos péptidos se cargan en moléculas MHC I y se presentan a linfocitos T CD8+.
El proteasoma participa así indirectamente en una pregunta inmunológica fundamental:
¿qué está ocurriendo dentro de esta célula?
20. Control de calidad asociado a ribosomas
La proteostasis comienza durante la propia traducción.
Algunas cadenas nacientes pueden quedar:
- incompletas;
- detenidas;
- mal traducidas;
- asociadas con ribosomas bloqueados.
La célula posee sistemas de ribosome-associated quality control (RQC) destinados a reconocer estos problemas.
El objetivo es evitar que cadenas defectuosas se acumulen.
21. Ribosome-associated quality control
Cuando un ribosoma se detiene de manera anómala, diferentes factores pueden:
- reconocer el complejo;
- separar subunidades ribosomales;
- marcar la cadena naciente;
- dirigirla a degradación.
De esta manera:
control de traducción → ubiquitinación → proteasoma
forman una continuidad proteostática.
22. ERAD: control de calidad del retículo endoplásmico
Muchas proteínas secretadas o de membrana se pliegan en el retículo endoplásmico.
Cuando una proteína no logra adquirir una conformación adecuada, puede ser reconocida por el sistema ERAD — Endoplasmic Reticulum-Associated Degradation.
De manera simplificada:
proteína defectuosa en RE
↓
reconocimiento
↓
retrotranslocación hacia citosol
↓
ubiquitinación
↓
proteasoma
ERAD demuestra cómo el proteasoma participa incluso en el control de calidad de proteínas originadas en otros compartimentos.
23. ERAD y Capítulo III
El sistema ERAD será retomado en el Capítulo III porque constituye uno de los mecanismos centrales utilizados durante la Unfolded Protein Response.
La célula intenta reducir el estrés del retículo mediante:
- menor síntesis;
- mayor capacidad de plegamiento;
- mayor eliminación de proteínas defectuosas.
Por tanto, ERAD representa el puente entre:
retículo endoplásmico ↔︎ ubiquitina-proteasoma.
24. Proteasoma y proteínas reguladoras
El proteasoma degrada numerosas proteínas perfectamente funcionales.
Esto no constituye un error.
Muchas deben eliminarse rápidamente para controlar procesos como:
- ciclo celular;
- transcripción;
- inflamación;
- señalización hormonal.
La degradación selectiva es, por tanto, un mecanismo de regulación temporal.
25. Ciclo celular
Proteínas como ciclinas deben aparecer y desaparecer en momentos precisos.
Su degradación permite avanzar de manera ordenada entre fases del ciclo celular.
Si este control falla pueden aparecer:
- proliferación inadecuada;
- inestabilidad genómica;
- cáncer.
Esto conecta directamente proteostasis e integridad genómica.
26. NF-κB y degradación regulada
La activación de NF-κB constituye otro ejemplo.
En condiciones basales, NF-κB puede mantenerse inhibido mediante proteínas IκB.
Tras determinadas señales, IκB es ubiquitinada y degradada.
Esto libera NF-κB para activar programas inflamatorios.
Así:
degradar una proteína
puede equivaler a:
activar una vía de señalización.
27. Proteasoma y reparación del ADN
El sistema ubiquitina participa también en respuesta al daño genómico.
Modifica proteínas involucradas en:
- reconocimiento de lesiones;
- señalización;
- reparación;
- control del ciclo celular.
Esto muestra otra interacción bidireccional:
inestabilidad genómica ↔︎ sistema ubiquitina-proteasoma.
28. Chaperonas y proteasoma
La Parte 1 mostró que las chaperonas pueden determinar que una proteína ya no sea recuperable.
En ese momento pueden facilitar su transferencia hacia degradación.
CHIP/STUB1 constituye un ejemplo central.
Puede interactuar con:
- HSP70;
- HSP90;
- proteínas cliente.
Su actividad E3 favorece ubiquitinación de determinados sustratos.
Así:
chaperona → decisión → ubiquitina → proteasoma.
29. El equilibrio entre refolding y degradación
La célula no busca maximizar una sola opción.
Demasiado refolding permitiría persistencia de moléculas irreparables.
Demasiada degradación produciría pérdida de proteínas potencialmente recuperables.
La homeostasis requiere:
suficiente reparación + suficiente eliminación.
Este equilibrio constituye una forma de eficiencia proteostática.
30. Proteasoma y agregación
Cuando disminuye la eliminación de proteínas vulnerables, aumenta la concentración de especies capaces de agregarse.
Pero existe también la relación inversa.
Grandes agregados pueden interferir con:
- transporte;
- chaperonas;
- proteasoma;
- autofagia.
Por ello puede establecerse un ciclo:
degradación insuficiente → agregación → mayor deterioro degradativo.
31. Cuando el UPS se satura
El UPS posee capacidad finita.
Durante situaciones de intensa carga proteotóxica pueden acumularse:
- proteínas ubiquitinadas;
- proteínas dañadas;
- agregados.
En esta situación aumenta la importancia de la vía autofágica-lisosomal.
Esto establece un principio central del capítulo:
UPS y autofagia son sistemas complementarios de una misma red de proteostasis.
32. Comunicación entre proteasoma y autofagia
Existen múltiples mecanismos de compensación.
Cuando el proteasoma se encuentra comprometido, puede aumentar la señalización hacia autofagia.
Cuando la autofagia disminuye, puede elevarse la presión sobre el UPS.
Sin embargo, ninguna de las dos vías puede reemplazar completamente a la otra.
Cada una maneja tipos diferentes de carga.
33. Tamaño del sustrato
De manera general:
proteínas individuales y solubles
son especialmente compatibles con el UPS.
En cambio:
agregados grandes, complejos y organelos
requieren con mayor frecuencia autofagia.
La diferencia no es absoluta, pero ayuda a comprender la distribución funcional.
34. Proteasoma y envejecimiento
Con la edad pueden observarse cambios en:
- expresión de subunidades;
- ensamblaje;
- actividad catalítica;
- capacidad de respuesta;
- regulación.
Sin embargo, la dirección y magnitud de estos cambios dependen del tejido.
No existe una disminución uniforme en todo el organismo.
Este punto es fundamental para mantener rigor científico.
35. Capacidad basal versus reserva proteasomal
Al igual que ocurrió con las chaperonas, es útil diferenciar:
actividad basal
de
capacidad de respuesta.
Una célula puede mantener suficiente degradación en reposo pero responder deficientemente cuando aumenta el daño.
Esta pérdida de reserva puede contribuir a la vulnerabilidad relacionada con la edad.
36. Estrés oxidativo y proteasoma
El estrés oxidativo puede afectar al sistema en dos direcciones.
Por un lado aumenta la cantidad de proteínas dañadas que requieren eliminación.
Por otro, un estrés excesivo puede modificar componentes del propio sistema degradativo.
La consecuencia puede ser:
carga ↑ + capacidad ↓.
Este patrón reproduce el modelo de pérdida de Reserva Proteostática.
37. Inflamación y proteasoma
Las citocinas pueden modificar la composición del sistema proteasomal.
La inducción del inmunoproteasoma representa un ejemplo de adaptación a un contexto inflamatorio.
Sin embargo, la inflamación crónica también aumenta:
- daño oxidativo;
- turnover de proteínas;
- demanda proteostática.
Por ello:
inflammaging y degradación proteica están profundamente conectados.
38. Proteasoma y mitocondrias
Aunque las mitocondrias contienen proteasas propias, numerosas proteínas mitocondriales son sintetizadas inicialmente en el citosol.
Si estas proteínas no logran importarse o plegarse correctamente, pueden ser eliminadas mediante UPS.
Además, la calidad de proteínas implicadas en:
- fusión;
- fisión;
- importación;
- mitofagia;
depende de mecanismos de ubiquitinación.
Esto conecta estrechamente:
proteasoma ↔︎ control de calidad mitocondrial.
39. Ubiquitina y mitofagia
La ubiquitinación también participa en la selección de mitocondrias dañadas para mitofagia.
El ejemplo clásico incluye vías relacionadas con:
- PINK1;
- Parkin.
La ubiquitina funciona aquí como una señal para reclutar maquinaria autofágica.
Este fenómeno demuestra que el código de ubiquitina conecta directamente:
UPS y autofagia.
40. Proteasoma y neurodegeneración
En diversas enfermedades neurodegenerativas se observan alteraciones relacionadas con:
- proteínas mal plegadas;
- agregación;
- ubiquitinación;
- sistemas degradativos.
Sin embargo, la presencia de proteínas ubiquitinadas dentro de inclusiones no demuestra por sí sola que el proteasoma sea la causa primaria de la enfermedad.
Puede reflejar:
- intento fallido de degradación;
- saturación;
- secuestro;
- proceso secundario.
La interpretación debe ser cuidadosa.
41. Proteasoma y músculo
El músculo necesita remodelar continuamente proteínas contráctiles.
El sistema ubiquitina-proteasoma participa en degradación muscular fisiológica y patológica.
Cuando la degradación se activa excesivamente puede contribuir a:
- atrofia;
- pérdida de masa muscular.
Por ello, nuevamente:
más degradación no significa mejor proteostasis.
La calidad depende del equilibrio entre síntesis y degradación.
42. Proteasoma y cáncer
Las células tumorales suelen presentar elevada demanda proteostática debido a:
- rápida proliferación;
- síntesis proteica aumentada;
- mutaciones;
- aneuploidía;
- estrés metabólico.
Esta dependencia explica por qué el proteasoma constituye un objetivo terapéutico en determinadas neoplasias.
Los inhibidores del proteasoma han demostrado utilidad en algunas enfermedades hematológicas.
Este hecho muestra nuevamente la naturaleza contextual de la proteostasis.
Reducir degradación puede ser perjudicial para una célula normal pero terapéutico contra determinadas células malignas.
43. Proteasoma e inmunidad
La inhibición, activación o remodelación del proteasoma puede alterar:
- presentación antigénica;
- producción de citocinas;
- activación inmunológica.
La proteostasis participa así directamente en el funcionamiento del sistema inmune.
44. Aplicaciones farmacológicas
El UPS representa una de las redes más atractivas para desarrollo farmacológico.
Existen estrategias dirigidas a:
- inhibir el proteasoma;
- bloquear E3 específicas;
- modificar DUBs;
- favorecer degradación de proteínas concretas.
Una de las tecnologías emergentes más importantes es la degradación dirigida de proteínas, desarrollada en el Capítulo VI.
45. PROTACs: adelanto conceptual
Los PROTACs utilizan la maquinaria natural de ubiquitinación para aproximar una proteína objetivo a una E3 ligasa.
De manera conceptual:
proteína objetivo + PROTAC + E3
↓
ubiquitinación
↓
degradación proteasomal.
Esta tecnología convierte la lógica natural del control proteico en una plataforma terapéutica.
Sin embargo, su aplicación actual se dirige a proteínas específicas y no representa una estrategia general para “rejuvenecer la proteostasis”.
46. Integración con los Hallmarks del Envejecimiento
El sistema ubiquitina-proteasoma conecta con múltiples Hallmarks.
Pérdida de proteostasis
Es uno de sus sistemas centrales de defensa.
Inestabilidad genómica
Regula proteínas de reparación y ciclo celular.
Disfunción mitocondrial
Controla proteínas citosólicas destinadas a mitocondria y participa en mitofagia.
Macroautofagia disminuida
Genera compensación y sobrecarga cruzada entre vías.
Desregulación de nutrient sensing
mTOR, AMPK y señalización metabólica regulan síntesis y degradación.
Senescencia celular
Alteraciones degradativas pueden contribuir a estrés persistente y remodelación del proteoma senescente.
Agotamiento de células madre
La calidad proteica es indispensable para autorrenovación y función regenerativa.
Inflamación crónica
El inmunoproteasoma y NF-κB conectan directamente degradación e inflamación.
47. Integración con el Modelo IXUGEN®
Dentro del Modelo IXUGEN®, el UPS constituye una maquinaria central de la Reserva Molecular.
Su función es preservar calidad mediante eliminación selectiva.
Pero su actividad depende de:
Reserva Metabólica
ATP para ubiquitinación y proteasoma 26S.
Reserva Inmunológica
modulación del inmunoproteasoma e inflamación.
Reserva Regenerativa
mantenimiento de células madre y tejidos.
Reserva Funcional
equilibrio adecuado entre síntesis y degradación en músculo, cerebro y otros órganos.
De esta forma, el proteasoma representa mucho más que un “triturador de proteínas”.
Constituye un sistema de gobernanza molecular.
Aplicaciones Clínicas
Actualmente, la evaluación del UPS en humanos se utiliza principalmente en investigación y en contextos especializados.
Pueden estudiarse:
- actividad proteasomal;
- proteínas ubiquitinadas;
- subunidades del proteasoma;
- inmunoproteasoma;
- patrones proteómicos.
Sin embargo, ninguna medición aislada permite determinar la salud global de la red proteostática.
Además, una actividad proteasomal elevada o reducida no puede interpretarse automáticamente como beneficiosa o perjudicial.
El contexto clínico es indispensable.
Mito
“Toda proteína ubiquitinada está destinada a degradación.”
Realidad
La ubiquitina participa en señalización, tráfico, reparación del ADN y múltiples procesos adicionales.
Mito
“Las E1, E2 y E3 realizan esencialmente la misma función.”
Realidad
Cumplen niveles diferentes de la cascada, y las E3 aportan gran parte de la especificidad hacia el sustrato.
Mito
“El proteasoma destruye proteínas al azar.”
Realidad
La degradación es altamente regulada y frecuentemente depende de señales moleculares específicas.
Mito
“Más actividad proteasomal siempre sería mejor.”
Realidad
La homeostasis depende de eliminar las proteínas correctas en el momento correcto. La degradación excesiva también puede ser patológica.
Mito
“El proteasoma elimina eficientemente cualquier agregado proteico.”
Realidad
Los grandes agregados suelen requerir cooperación con sistemas autofágicos y lisosomales.
Mito
“El proteasoma simplemente disminuye de manera uniforme con la edad.”
Realidad
El envejecimiento produce cambios heterogéneos y dependientes del tejido en actividad, ensamblaje y regulación.
La degradación proteica es una forma de inteligencia molecular. La célula debe reconocer qué proteínas continúan siendo útiles, cuáles pueden repararse y cuáles representan un riesgo suficiente para justificar su eliminación. El sistema ubiquitina–proteasoma convierte esta decisión en una operación altamente específica, demostrando que la Resiliencia Molecular depende tanto de preservar estructuras funcionales como de saber retirarlas oportunamente.
- Ubiquitina funciona como un lenguaje molecular, no únicamente como etiqueta de destrucción.
- Las E3 ligasas aportan gran parte de la especificidad del sistema.
- Las DUBs pueden editar o revertir señales de ubiquitina.
- El proteasoma 26S combina reconocimiento, desplegamiento y proteólisis.
- El núcleo 20S puede participar en eliminación de determinadas proteínas oxidadas.
- El inmunoproteasoma conecta proteostasis e inmunidad.
- El control de calidad proteico comienza durante la traducción.
- ERAD conecta el retículo endoplásmico con el proteasoma.
- UPS y autofagia son sistemas complementarios.
- Ubiquitina participa también en mitofagia.
- La degradación excesiva puede ser tan problemática como la degradación insuficiente.
- La actividad proteasomal debe interpretarse siempre según tejido y contexto.
Al finalizar esta segunda parte, deben quedar establecidos los siguientes principios:
- La degradación selectiva constituye una forma esencial de regulación celular.
- Ubiquitina puede transmitir múltiples tipos de señales.
- La cascada E1–E2–E3 permite seleccionar proteínas específicas.
- Las E3 ligasas representan un nivel central de reconocimiento.
- Las cadenas de ubiquitina poseen arquitecturas con significados diferentes.
- Las DUBs hacen que el sistema sea dinámico y reversible.
- El proteasoma 26S reconoce, despliega y degrada muchos sustratos ubiquitinados.
- El proteasoma 20S participa en determinados contextos de daño oxidativo.
- El inmunoproteasoma conecta degradación y presentación antigénica.
- RQC elimina proteínas defectuosas generadas durante la traducción.
- ERAD conecta control de calidad del retículo con degradación citosólica.
- El UPS coopera directamente con chaperonas, mitocondrias y autofagia.
- El envejecimiento altera el UPS de forma heterogénea, no uniforme.
- La homeostasis depende del equilibrio entre síntesis y degradación.
- El sistema ubiquitina-proteasoma representa un componente fundamental de la Reserva Molecular.
Introducción
La Parte 2 estableció que el sistema ubiquitina–proteasoma constituye una maquinaria extraordinariamente eficiente para reconocer y degradar numerosas proteínas individuales, especialmente aquellas que permanecen solubles y pueden ser desplegadas antes de su entrada al proteasoma.
Sin embargo, la célula enfrenta un segundo problema de control de calidad.
¿Qué ocurre cuando el material dañado ya no está constituido por una proteína individual, sino por:
- agregados;
- complejos macromoleculares;
- proteínas insolubles;
- estructuras difíciles de desplegar;
- organelos completos?
En estas condiciones, el proteasoma resulta insuficiente.
La célula necesita una estrategia capaz de capturar grandes porciones de material, aislarlas del citoplasma y transportarlas hacia un compartimento degradativo especializado.
Esta función corresponde principalmente al sistema:
autofagia → lisosoma.
Como se desarrolló ampliamente en el CÓDICE 007, la autofagia constituye uno de los principales sistemas celulares de reciclaje. En el presente códice no se repetirá toda su biología general. Se analizará específicamente su función dentro de la red de proteostasis.
Desde esta perspectiva, la autofagia representa el brazo macromolecular del control de calidad.
Mientras el proteasoma actúa con gran precisión sobre muchas proteínas individuales, la autofagia permite gestionar cargas más voluminosas y complejas.
Ambos sistemas están profundamente coordinados.
1. Macroautofagia como sistema de control de calidad
La macroautofagia implica la formación de una estructura membranosa que rodea material citoplasmático.
De manera simplificada:
carga celular
↓
fagóforo
↓
autofagosoma
↓
fusión con lisosoma
↓
degradación
↓
reciclaje
El autofagosoma permite aislar temporalmente materiales potencialmente dañinos del resto del citoplasma.
Posteriormente, el lisosoma completa su degradación.
2. Autofagia no significa únicamente degradación inespecífica
Durante mucho tiempo se describió la macroautofagia como una forma relativamente indiscriminada de degradación citoplasmática.
Actualmente se reconoce una realidad mucho más sofisticada.
Existen múltiples modalidades de autofagia selectiva capaces de reconocer cargas específicas.
Entre ellas:
- mitofagia;
- agrefagia;
- lipofagia;
- reticulofagia;
- ribofagia;
- xenofagia.
Cada una utiliza mecanismos de reconocimiento adaptados al tipo de carga.
Por ello, la autofagia es también un sistema de selección molecular.
3. Agrefagia
La agrefagia es una forma de autofagia selectiva dirigida contra agregados proteicos.
Su importancia radica en que determinados agregados:
- son demasiado grandes para el proteasoma;
- no pueden desplegarse de manera eficiente;
- pueden interferir con membranas y organelos;
- pueden secuestrar proteínas funcionales.
La agrefagia permite capturarlos y transportarlos hacia lisosomas.
4. Ubiquitina como puente entre UPS y autofagia
La Parte 2 mostró que ubiquitina puede señalar proteínas para degradación proteasomal.
Pero la misma molécula puede participar también en autofagia.
Determinados agregados o complejos pueden encontrarse ubiquitinados.
Proteínas adaptadoras reconocen simultáneamente:
- ubiquitina;
- maquinaria autofágica.
Esto crea un puente funcional.
Uno de los ejemplos mejor conocidos es:
p62/SQSTM1.
5. p62/SQSTM1
p62 es una proteína adaptadora capaz de interactuar con:
- proteínas ubiquitinadas;
- LC3 y proteínas relacionadas en membranas autofágicas.
Puede funcionar como un receptor que conecta una carga con el autofagosoma.
De forma simplificada:
agregado ubiquitinado
↓
p62
↓
LC3/autofagosoma
↓
lisosoma.
Este mecanismo demuestra que ubiquitina no determina por sí sola un único destino.
Puede señalar proteínas tanto hacia:
- proteasoma;
- autofagia.
6. Otros receptores de autofagia selectiva
p62 no actúa solo.
Existen otros receptores capaces de reconocer cargas específicas, entre ellos:
- NBR1;
- OPTN;
- NDP52;
- TAX1BP1.
La redundancia y especialización de estos sistemas aumentan la capacidad de la célula para gestionar diferentes formas de daño.
7. LC3 y membrana autofágica
Las proteínas de la familia LC3/GABARAP participan en la formación y función del autofagosoma.
Los receptores selectivos pueden interactuar con estas proteínas mediante motivos específicos.
Esto permite conectar físicamente:
carga → receptor → membrana autofágica.
La selectividad de la autofagia depende en buena medida de estos mecanismos de reconocimiento.
8. Formación del autofagosoma
El autofagosoma se forma mediante una secuencia coordinada de eventos.
Participan complejos relacionados con:
- ULK1;
- Beclin 1;
- VPS34;
- ATG proteins;
- LC3/GABARAP.
El proceso incluye:
- iniciación;
- nucleación;
- elongación de membrana;
- cierre;
- maduración;
- fusión con lisosoma.
Cada etapa puede convertirse en un punto de regulación o vulnerabilidad.
9. La degradación no termina con el autofagosoma
Un error conceptual frecuente consiste en considerar que formar más autofagosomas significa automáticamente mayor degradación.
No es correcto.
La autofagia eficiente requiere completar todo el proceso.
Esto se conoce como:
flujo autofágico.
Una célula puede acumular autofagosomas porque:
- aumentó la formación;
- o porque disminuyó la degradación final.
Por ello, cuantificar únicamente autofagosomas puede ser engañoso.
10. Fusión autofagosoma–lisosoma
Para completar la degradación, el autofagosoma debe fusionarse con el lisosoma.
Este proceso requiere:
- proteínas SNARE;
- Rab GTPasas;
- factores de tethering;
- función adecuada de membranas.
Si la fusión falla, el material permanece sin degradarse.
Así, la proteostasis depende de una secuencia completa, no únicamente de reconocimiento inicial.
11. El lisosoma
El lisosoma constituye uno de los principales centros degradativos de la célula.
Su lumen mantiene un ambiente ácido gracias a sistemas como la V-ATPasa.
En este entorno actúan numerosas hidrolasas.
Entre ellas:
- proteasas;
- lipasas;
- nucleasas;
- glucosidasas.
Estas enzimas permiten descomponer grandes macromoléculas en componentes reutilizables.
12. Catepsinas
Las catepsinas son proteasas lisosomales importantes.
Participan en la degradación de proteínas transportadas hacia el lisosoma mediante:
- autofagia;
- endocitosis;
- otras vías.
Su función depende del ambiente ácido lisosomal.
Cambios en:
- pH;
- actividad enzimática;
- integridad de membrana;
pueden comprometer degradación.
13. Reciclaje lisosomal
Los productos obtenidos tras degradación pueden regresar al citoplasma.
Entre ellos:
- aminoácidos;
- azúcares;
- ácidos grasos;
- nucleótidos.
Estos componentes pueden reutilizarse en:
- síntesis;
- metabolismo energético;
- reparación.
Así, el lisosoma constituye simultáneamente:
estación degradativa + centro de reciclaje metabólico.
14. Autofagia mediada por chaperonas
La autofagia mediada por chaperonas (CMA) representa una modalidad diferente de degradación lisosomal.
No requiere formar un autofagosoma completo.
Determinadas proteínas citosólicas son reconocidas individualmente por sistemas de chaperonas.
Una proteína cliente contiene un motivo reconocible relacionado con la secuencia KFERQ o variantes funcionalmente equivalentes.
Hsc70 participa en el reconocimiento.
Posteriormente, la proteína se dirige hacia la membrana lisosomal.
15. LAMP2A
En la membrana lisosomal, el receptor central de CMA es LAMP2A.
La proteína sustrato se une al complejo y debe desplegarse para atravesar la membrana.
Posteriormente entra al lisosoma y es degradada.
Este proceso crea una vía altamente selectiva:
chaperona → reconocimiento → LAMP2A → translocación → degradación lisosomal.
CMA constituye, por tanto, un puente directo entre:
chaperonas y lisosomas.
16. CMA y proteostasis
CMA permite eliminar proteínas específicas sin destruir grandes regiones citoplasmáticas.
Participa en:
- respuesta al estrés;
- metabolismo;
- control de calidad;
- adaptación nutricional.
Su actividad puede aumentar frente a determinadas formas de estrés.
Esto refuerza el principio de que la capacidad degradativa es dinámica y adaptable.
17. CMA y envejecimiento
La actividad de CMA puede disminuir con la edad en distintos modelos.
Uno de los mecanismos descritos incluye cambios relacionados con la estabilidad y abundancia de LAMP2A en la membrana lisosomal.
La consecuencia puede ser una menor capacidad para eliminar determinadas proteínas dañadas.
Este fenómeno constituye una conexión directa entre:
envejecimiento → deterioro lisosomal → pérdida de proteostasis.
18. Agresomas
Cuando la carga de proteínas mal plegadas aumenta, determinadas proteínas pueden transportarse hacia regiones perinucleares formando agresomas.
Este fenómeno depende parcialmente del citoesqueleto y motores moleculares.
Los agresomas pueden:
- concentrar material dañado;
- reducir interacciones dispersas;
- facilitar reconocimiento autofágico.
En determinados contextos constituyen una estrategia protectora de contención.
19. Agresoma no equivale necesariamente a fracaso
Al igual que ocurre con otros agregados, la aparición de un agresoma no debe interpretarse automáticamente como pérdida total de control.
Puede representar un intento organizado de la célula por reducir toxicidad.
El problema aparece cuando:
- la carga continúa aumentando;
- la eliminación es insuficiente;
- el material se vuelve persistente.
La biología de la proteostasis depende nuevamente del equilibrio entre:
formación y eliminación.
20. Chaperonas, UPS y agrefagia
Una misma proteína dañada puede recorrer diferentes rutas.
Por ejemplo:
misfolding
↓
HSP70
↓
si es recuperable:
refolding
si persiste el daño:
ubiquitinación
↓
si permanece soluble:
proteasoma
si forma agregados:
p62/agrefagia
↓
lisosoma.
Esta secuencia resume la arquitectura integrada del Capítulo II.
21. ¿Quién decide entre proteasoma y autofagia?
No existe un único interruptor molecular.
La decisión depende de múltiples variables:
- tamaño;
- solubilidad;
- estado de ubiquitinación;
- grado de agregación;
- localización;
- disponibilidad de maquinaria;
- actividad metabólica.
Las proteínas adaptadoras y chaperonas contribuyen a esta selección.
22. Compensación entre UPS y autofagia
Cuando el proteasoma se encuentra inhibido o sobrecargado, la célula puede aumentar determinadas respuestas autofágicas.
De forma inversa, una autofagia deficiente puede incrementar la presión sobre el UPS.
Este fenómeno puede describirse como compensación cruzada.
Sin embargo, la compensación posee límites.
Si ambos sistemas se deterioran simultáneamente, la carga proteotóxica aumenta de manera importante.
23. p62 como indicador de flujo: una precaución
p62 puede degradarse durante autofagia.
Por ello, sus niveles se utilizan frecuentemente en investigación.
Sin embargo, interpretar p62 de forma aislada es difícil.
Un aumento puede reflejar:
- menor degradación;
- mayor producción;
- respuesta al estrés.
Por tanto, no constituye por sí solo una medida definitiva del flujo autofágico.
Esta precaución será importante en el Capítulo V dedicado a biomarcadores.
24. Proteostasis y mitofagia
Aunque la mitofagia elimina organelos y no simplemente agregados proteicos, forma parte del mismo principio de control de calidad.
Una mitocondria dañada contiene:
- proteínas alteradas;
- lípidos dañados;
- ADN mitocondrial comprometido.
Eliminar el organelo completo puede ser más eficiente que intentar reparar cada molécula individual.
La mitofagia representa así una forma de proteostasis de nivel superior.
25. PINK1 y Parkin
Una de las vías mejor conocidas de mitofagia involucra:
- PINK1;
- Parkin.
En condiciones de daño mitocondrial, PINK1 puede acumularse en la superficie mitocondrial y favorecer reclutamiento/activación de Parkin.
Parkin funciona como E3 ubiquitina ligasa.
Se produce ubiquitinación de proteínas de la membrana mitocondrial.
Estas señales pueden ser reconocidas por receptores autofágicos.
De esta manera:
ubiquitina → receptor autofágico → mitofagia.
Esta vía representa un puente molecular directo entre el sistema estudiado en la Parte 2 y el desarrollado aquí.
26. Reticulofagia
El retículo endoplásmico también puede renovarse selectivamente mediante reticulofagia o ER-phagy.
Esta vía ayuda a controlar:
- tamaño del RE;
- regiones dañadas;
- proteínas problemáticas;
- recuperación tras estrés.
La reticulofagia conecta la autofagia con el Capítulo III, dedicado al estrés del retículo endoplásmico y la UPR.
27. Ribofagia
Los ribosomas pueden ser eliminados selectivamente en determinadas condiciones.
La ribofagia permite remodelar la maquinaria de síntesis.
Esto demuestra nuevamente que la proteostasis no solo controla proteínas individuales.
También regula las máquinas que producen proteínas.
28. Lisofagia
Incluso los lisosomas pueden dañarse.
La célula posee mecanismos para reconocer y eliminar lisosomas lesionados mediante lisofagia.
Este concepto es importante porque la degradación proteostática depende de que el propio sistema degradativo conserve su integridad.
La maquinaria de control de calidad también necesita control de calidad.
29. TFEB y biogénesis lisosomal
Uno de los reguladores importantes de la red autofagia-lisosoma es TFEB.
Puede activar programas relacionados con:
- biogénesis lisosomal;
- autofagia;
- degradación.
En determinadas condiciones, su translocación al núcleo aumenta la capacidad degradativa.
TFEB representa otro ejemplo de respuesta adaptativa capaz de expandir temporalmente la reserva proteostática.
30. TFE3 y regulación relacionada
Otros factores de la familia MiT/TFE, como TFE3, participan también en regulación de genes lisosomales y autofágicos.
Esto demuestra que la capacidad degradativa posee regulación transcripcional coordinada.
No se limita a la cantidad basal de lisosomas existentes.
31. mTORC1 y lisosoma
El lisosoma funciona también como plataforma de señalización metabólica.
mTORC1 puede asociarse a su superficie y responder a disponibilidad de nutrientes.
En condiciones de abundancia:
mTORC1 ↑ → síntesis y crecimiento ↑ → autofagia ↓.
Cuando disminuye la disponibilidad energética o aparecen determinadas señales:
mTORC1 ↓ → autofagia puede aumentar.
Esto conecta directamente:
nutrient sensing ↔︎ proteostasis.
32. AMPK
AMPK funciona como sensor energético.
Cuando aumenta la relación AMP/ATP, puede favorecer programas de conservación y reciclaje.
Entre sus efectos se encuentra la promoción de autofagia mediante diferentes mecanismos.
La relación entre AMPK y mTOR permite ajustar:
producción ↔︎ degradación
según disponibilidad energética.
33. El concepto de flujo
La proteostasis depende del flujo de materia.
Una proteína debe poder avanzar a través de las etapas apropiadas.
Por ejemplo:
daño → reconocimiento → transporte → degradación → reciclaje.
Si cualquiera de estas etapas se bloquea, el material puede acumularse.
Esto explica por qué evaluar proteostasis requiere estudiar dinámica, no solo cantidades estáticas.
34. Autofagia y ejercicio
El ejercicio puede activar mecanismos autofágicos en distintos tejidos dependiendo de:
- intensidad;
- duración;
- estado metabólico;
- entrenamiento previo.
Esta respuesta contribuye a:
- remodelación;
- adaptación mitocondrial;
- control de calidad.
Parte del beneficio del ejercicio puede relacionarse con una mayor capacidad para renovar componentes celulares.
35. Autofagia y ayuno
La reducción transitoria de disponibilidad de nutrientes puede modular:
- mTOR;
- AMPK;
- autofagia.
Sin embargo, el efecto depende de:
- duración;
- tejido;
- estado energético;
- especie.
No debe extrapolarse automáticamente la activación autofágica observada en modelos experimentales a protocolos humanos específicos de “rejuvenecimiento”.
36. Autofagia y proteína dietaria
La ingesta de aminoácidos estimula señales anabólicas, especialmente en músculo.
Esto puede parecer opuesto a la autofagia.
En realidad, ambos procesos son necesarios en momentos diferentes.
La homeostasis requiere alternar entre:
síntesis y crecimiento
y
mantenimiento y reciclaje.
Por ello, anabolismo y autofagia no deben presentarse como enemigos.
37. Proteostasis muscular
El músculo necesita renovar:
- proteínas contráctiles;
- mitocondrias;
- componentes del sarcómero.
La autofagia deficiente puede contribuir a:
- acumulación de estructuras dañadas;
- deterioro muscular.
Pero una autofagia excesiva o desregulada también puede favorecer pérdida de componentes.
Nuevamente, el principio central es equilibrio.
38. Autofagia y neurobiología
Las neuronas dependen de un transporte intracelular extremadamente largo.
Autofagosomas pueden formarse en regiones distales y desplazarse hacia compartimentos con mayor capacidad degradativa.
La alteración de:
- transporte axonal;
- autofagia;
- lisosomas;
puede comprometer la eliminación de proteínas y organelos dañados.
Esto ayuda a explicar la vulnerabilidad neuronal frente a pérdida de proteostasis.
39. Proteínas asociadas con neurodegeneración
La autofagia participa en el manejo de proteínas relacionadas con:
- tau;
- α-sinucleína;
- TDP-43;
- huntingtina.
Sin embargo, la relación entre aumentar autofagia y mejorar enfermedad no es lineal.
Dependiendo del punto bloqueado, aumentar la formación de autofagosomas sin mejorar degradación lisosomal podría incluso empeorar acumulación.
Por ello, el objetivo científico debe ser restaurar el flujo completo.
40. Lisosomas y envejecimiento
Con la edad pueden aparecer cambios en:
- acidificación;
- permeabilidad;
- biogénesis;
- actividad enzimática;
- acumulación de residuos.
Estos cambios disminuyen la capacidad de completar procesos autofágicos.
El envejecimiento lisosomal puede convertirse así en un cuello de botella para toda la red de proteostasis.
41. Lipofuscina
La acumulación de lipofuscina en determinadas células refleja material parcialmente resistente a degradación.
Puede ocupar espacio lisosomal e interferir con la eficiencia degradativa.
Su presencia aumenta especialmente en células de larga vida.
La lipofuscina ilustra cómo la incapacidad de degradar completamente determinados residuos puede generar acumulación progresiva.
42. Autofagia y senescencia
La relación es compleja.
Una autofagia adecuada puede ayudar a:
- limitar daño;
- preservar función;
- reducir estrés.
Pero las células senescentes presentan también un sistema lisosomal aumentado y profundas alteraciones metabólicas.
La autofagia puede participar de maneras diferentes según la etapa y el contexto de senescencia.
Por ello, no debe afirmarse simplemente que:
más autofagia = menos senescencia.
43. SASP y lisosomas
La producción del SASP requiere una elevada actividad biosintética y secretora.
Las células senescentes muestran cambios importantes en:
- retículo endoplásmico;
- Golgi;
- lisosomas;
- metabolismo.
La relación entre senescencia y proteostasis constituye otra red bidireccional que enlaza directamente con el CÓDICE 008.
44. Autofagia y células madre
Las células madre dependen de una autofagia eficiente para:
- mantener quiescencia;
- controlar mitocondrias;
- limitar proteínas dañadas;
- preservar identidad.
La pérdida de autofagia puede contribuir al deterioro de su capacidad regenerativa.
Esto conecta:
proteostasis → células madre → Reserva Regenerativa.
45. Lisosomas como centros de señalización
El lisosoma ya no se considera únicamente una “bolsa de enzimas”.
Actúa como plataforma de señalización para:
- mTOR;
- AMPK indirectamente;
- disponibilidad de aminoácidos;
- metabolismo.
Por tanto, controla tanto:
degradación
como:
decisiones anabólicas posteriores.
46. Reciclaje y nueva síntesis
Los aminoácidos liberados por degradación lisosomal pueden contribuir a activar nuevamente vías de síntesis cuando las condiciones son adecuadas.
Esto completa un ciclo:
degradación → liberación de nutrientes → señalización → nueva síntesis.
La proteostasis es así inseparable del metabolismo.
47. ¿Qué ocurre cuando fallan simultáneamente UPS y autofagia?
Si disminuyen simultáneamente:
- proteasoma;
- autofagia;
- función lisosomal;
puede producirse un incremento marcado de:
- proteínas ubiquitinadas;
- agregados;
- organelos dañados;
- estrés oxidativo;
- estrés del RE.
Esta situación puede empujar a la célula hacia:
- inflamación;
- senescencia;
- apoptosis.
Representa un escenario de colapso proteostático avanzado.
48. Integración de los tres grandes brazos
La red desarrollada hasta ahora puede representarse:
PROTEÍNA VULNERABLE
↓
CHAPERONAS
↙︎ ↘︎
REFOLDING DAÑO PERSISTENTE
↓ ↓
FUNCIÓN UBIQUITINACIÓN
↙︎ ↘︎
PROTEASOMA AGREGACIÓN
↓
AGREFAGIA
↓
LISOSOMA
↓
RECICLAJE
Esto constituye la esencia de la red molecular de proteostasis.
49. Integración con los Hallmarks del Envejecimiento
La vía autofagia-lisosoma conecta con múltiples Hallmarks.
Pérdida de proteostasis
Elimina proteínas agregadas y estructuras dañadas.
Macroautofagia disminuida
Constituye directamente uno de los Hallmarks ampliados.
Disfunción mitocondrial
Mitofagia mantiene la calidad mitocondrial.
Desregulación de nutrient sensing
mTOR y AMPK controlan autofagia.
Senescencia celular
La capacidad degradativa influye sobre daño y SASP.
Agotamiento de células madre
La autofagia contribuye al mantenimiento de quiescencia y función.
Inflamación crónica
La acumulación de material dañado puede favorecer señales inflamatorias.
Comunicación intercelular alterada
La degradación celular modifica secreción y respuesta al estrés.
50. Integración con los CÓDICES anteriores
El presente capítulo utiliza directamente el conocimiento ya establecido en:
CÓDICE 005 — Mitocondrias
Mitofagia y control de calidad mitocondrial.
CÓDICE 006 — Redox
Daño oxidativo aumenta carga degradativa.
CÓDICE 007 — Autofagia
Arquitectura molecular y función lisosomal.
CÓDICE 008 — Senescencia
Consecuencias de un estrés celular persistente y alteraciones lisosomales.
El objetivo del CÓDICE 009 es integrar esos mecanismos específicamente dentro del problema de mantener la calidad del proteoma.
51. Integración con el Modelo IXUGEN®
En el Modelo IXUGEN®, la vía autofagia-lisosoma constituye una interfaz entre varias reservas.
Reserva Molecular
Elimina proteínas y complejos dañados.
Reserva Metabólica
Recupera aminoácidos y regula disponibilidad energética.
Reserva Inmunológica
Reduce material potencialmente proinflamatorio y participa en defensa celular.
Reserva Regenerativa
Preserva la calidad molecular de células madre.
Reserva Funcional
Mantiene calidad de tejidos de larga vida, especialmente músculo y sistema nervioso.
Por ello, la degradación lisosomal no representa únicamente “limpieza”.
Es un mecanismo central de recuperación de recursos y resiliencia.
Aplicaciones Clínicas
La evaluación clínica directa de la autofagia continúa siendo difícil.
En investigación pueden emplearse:
- LC3;
- p62;
- proteínas ATG;
- LAMP2A;
- marcadores lisosomales;
- estudios de flujo autofágico;
- microscopía;
- biopsias.
Pero los valores estáticos pueden ser engañosos.
La pregunta relevante no es solamente:
¿cuántos autofagosomas existen?
sino:
¿se está completando eficazmente el flujo desde reconocimiento hasta degradación?
En humanos, esta distinción continúa siendo una limitación importante.
Mito
“Autofagia significa degradación indiscriminada del citoplasma.”
Realidad
Existen numerosas formas altamente selectivas de autofagia.
Mito
“Más autofagosomas significa más autofagia.”
Realidad
También puede significar un bloqueo en las etapas finales. Debe evaluarse flujo.
Mito
“El proteasoma y la autofagia son sistemas independientes.”
Realidad
Comparten señales como ubiquitina y muestran compensación cruzada.
Mito
“La agrefagia elimina cualquier agregado sin limitaciones.”
Realidad
Su eficiencia depende del reconocimiento, transporte, fusión y función lisosomal.
Mito
“Activar autofagia siempre es beneficioso.”
Realidad
La respuesta depende del tejido, intensidad, estado metabólico y punto específico donde exista la alteración.
Mito
“Ayunar demuestra automáticamente que se está rejuveneciendo el proteoma.”
Realidad
El ayuno puede modular vías relacionadas con autofagia, pero esto no equivale a demostrar rejuvenecimiento proteostático clínico.
La proteostasis no termina cuando una proteína es marcada como defectuosa. La resiliencia depende de que el sistema complete todo el recorrido: reconocer el daño, seleccionar la vía correcta, transportar la carga, degradarla y recuperar sus componentes. Chaperonas, ubiquitina, proteasoma, autofagia y lisosoma forman así una cadena continua de decisiones; un fallo tardío puede anular una respuesta inicialmente correcta.
- Autofagia constituye el brazo macromolecular de la proteostasis.
- Agrefagia permite gestionar determinados agregados proteicos.
- Ubiquitina puede dirigir cargas tanto al proteasoma como a autofagia.
- p62/SQSTM1 conecta cargas ubiquitinadas con LC3.
- El flujo autofágico es más importante que el número aislado de autofagosomas.
- El lisosoma completa degradación y reciclaje.
- CMA degrada proteínas individuales mediante reconocimiento por chaperonas y LAMP2A.
- Mitofagia representa control de calidad a nivel de organelo.
- TFEB coordina programas de biogénesis lisosomal y autofagia.
- mTOR y AMPK conectan nutrient sensing con degradación.
- La pérdida lisosomal puede convertirse en cuello de botella de toda la red.
- La autofagia excesiva o incompleta también puede ser patológica.
- La calidad proteostática depende de completar el flujo, no solo de activarlo.
Al finalizar esta tercera parte deben quedar establecidos los siguientes principios:
- La autofagia complementa al sistema ubiquitina-proteasoma.
- Los grandes agregados y estructuras complejas requieren frecuentemente degradación autofágica-lisosomal.
- La agrefagia constituye una forma selectiva de eliminación de agregados.
- p62 y otros receptores conectan ubiquitina con la maquinaria autofágica.
- El flujo autofágico implica formación, transporte, fusión, degradación y reciclaje.
- El lisosoma constituye tanto un centro degradativo como metabólico.
- CMA conecta directamente chaperonas con degradación lisosomal.
- Mitofagia extiende el control de calidad desde proteínas individuales hasta organelos.
- mTOR, AMPK y TFEB coordinan metabolismo y capacidad degradativa.
- UPS y autofagia muestran compensación cruzada pero no son intercambiables.
- El envejecimiento puede deteriorar distintos puntos del flujo autofagia-lisosoma.
- Chaperonas, UPS y autofagia forman una única red de proteostasis.
- La degradación eficaz requiere reconocer, transportar, destruir y reciclar.
- La vía autofagia-lisosoma constituye un componente central de la Reserva Molecular y de la Resiliencia Biológica.
Introducción
Las partes anteriores reconstruyeron los principales brazos de la red proteostática.
Las chaperonas intentan estabilizar y recuperar proteínas vulnerables.
El sistema ubiquitina-proteasoma permite seleccionar y degradar numerosas proteínas individuales.
La autofagia y los lisosomas manejan agregados, estructuras complejas y organelos dañados.
Sin embargo, estos sistemas no operan de manera aislada ni se activan al azar.
La célula necesita coordinar continuamente:
- cuánto sintetizar;
- cuánto plegar;
- cuánto reparar;
- cuánto degradar;
- cuánta energía invertir;
- qué ruta priorizar;
- cuándo reducir crecimiento;
- cuándo activar reciclaje;
- cuándo iniciar una respuesta de estrés.
La proteostasis es, por tanto, una red de gobernanza molecular regulada por sensores metabólicos, transcripcionales y organelares.
Entre los principales nodos de esta coordinación destacan:
- HSF1;
- mTOR;
- AMPK;
- TFEB;
- NRF2;
- sistemas de señalización mitocondrial;
- mecanismos de comunicación interorganelar.
El envejecimiento altera progresivamente esta coordinación.
El problema deja de ser solamente que un componente falle.
Puede perderse la capacidad de sincronizar toda la respuesta proteostática.
1. La proteostasis como problema de asignación de recursos
Mantener un proteoma funcional exige una cantidad considerable de recursos.
La célula debe invertir:
- ATP;
- aminoácidos;
- lípidos;
- capacidad ribosomal;
- membranas;
- enzimas;
- capacidad lisosomal.
En condiciones de abundancia energética puede priorizar:
síntesis → crecimiento → función.
Durante estrés puede necesitar cambiar hacia:
mantenimiento → reparación → degradación → reciclaje.
La capacidad de realizar esta transición representa una forma fundamental de flexibilidad celular.
2. La síntesis proteica puede convertirse en una carga
Producir proteínas es indispensable.
Pero durante estrés proteotóxico, continuar sintetizando grandes cantidades puede empeorar el problema.
Si la capacidad de plegamiento está saturada:
síntesis elevada → nuevas cadenas vulnerables → mayor carga proteotóxica.
Por ello, muchas respuestas de estrés reducen temporalmente la traducción.
Esta estrategia permite liberar capacidad para gestionar proteínas ya existentes.
3. mTOR como regulador anabólico central
mTOR — mechanistic Target of Rapamycin integra señales relacionadas con:
- aminoácidos;
- factores de crecimiento;
- energía;
- disponibilidad de nutrientes.
Uno de sus complejos principales, mTORC1, favorece:
- síntesis proteica;
- biogénesis ribosomal;
- crecimiento celular.
Al mismo tiempo puede inhibir autofagia en condiciones de abundancia.
Por ello, mTOR ocupa una posición estratégica entre:
producción de proteínas
y
reciclaje proteostático.
4. mTOR no es "malo"
Es incorrecto interpretar mTOR únicamente como una vía promotora del envejecimiento.
mTOR es indispensable para:
- crecimiento;
- reparación;
- respuesta anabólica;
- función inmunológica;
- síntesis muscular.
El problema aparece cuando existe una activación inapropiada, crónica o mal coordinada con el estado energético y proteostático.
La fisiología requiere oscilación.
5. Proteostasis necesita fases anabólicas y catabólicas
Una célula funcional alterna entre:
construcción
y
renovación.
Una señal anabólica constante podría aumentar la carga de síntesis y reducir oportunidades de reciclaje.
Una señal catabólica permanente produciría pérdida de estructuras funcionales.
La homeostasis depende de una transición ordenada entre ambos estados.
6. AMPK: sensor energético
AMPK — AMP-activated protein kinase responde a cambios en el estado energético.
Cuando disminuye la disponibilidad de ATP y aumentan señales relacionadas con AMP/ADP, AMPK puede activarse.
Entre sus efectos se encuentran:
- favorecer conservación energética;
- reducir determinados procesos anabólicos;
- estimular oxidación de sustratos;
- promover autofagia en determinados contextos.
AMPK constituye así un contrapeso funcional de mTOR.
7. AMPK y autofagia
AMPK puede favorecer autofagia mediante mecanismos que incluyen regulación de:
- ULK1;
- mTORC1.
Cuando la célula detecta déficit energético:
AMPK ↑
puede favorecer:
reciclaje de componentes → recuperación de sustratos → adaptación.
Esto convierte la autofagia en una estrategia tanto proteostática como metabólica.
8. mTOR y AMPK como sistema dinámico
No deben imaginarse como interruptores completamente opuestos.
Ambos forman parte de una red integrada.
La respuesta depende de:
- nutrientes;
- ejercicio;
- estrés;
- estado energético;
- señales hormonales.
El equilibrio dinámico entre ambos ayuda a decidir:
crecer o mantener.
9. TFEB: expansión de la capacidad lisosomal
Cuando aumenta la necesidad degradativa, la célula puede incrementar su capacidad lisosomal.
Uno de los principales reguladores es TFEB.
TFEB puede activar genes relacionados con:
- autofagia;
- biogénesis lisosomal;
- degradación.
En determinadas condiciones, TFEB se desplaza hacia el núcleo y amplifica el sistema degradativo.
Esto representa una respuesta adaptativa de segundo nivel:
no solo utilizar los lisosomas existentes, sino producir más capacidad degradativa.
10. TFEB y mTORC1
mTORC1 regula TFEB.
En condiciones de abundancia de nutrientes, mTORC1 puede favorecer la retención de TFEB fuera del núcleo.
Cuando mTORC1 disminuye, TFEB puede translocarse con mayor facilidad al núcleo en determinados contextos.
De esta forma:
nutrient sensing → control transcripcional → capacidad lisosomal.
11. TFE3 y la familia MiT/TFE
TFEB no funciona de manera aislada.
Factores relacionados como TFE3 pueden participar en programas de:
- autofagia;
- metabolismo;
- biogénesis lisosomal.
Esta familia permite coordinar cambios relativamente amplios frente a estrés celular.
12. HSF1 como regulador de capacidad de plegamiento
Mientras TFEB amplía principalmente el brazo degradativo, HSF1 aumenta capacidad relacionada con chaperonas.
La célula dispone así de diferentes programas.
Si predominan proteínas desplegadas:
HSF1 → chaperonas ↑.
Si aumenta la necesidad degradativa:
TFEB/TFE3 → autofagia-lisosoma ↑.
Estas respuestas pueden coexistir.
13. NRF2: respuesta antioxidante y proteostasis
NRF2 — Nuclear factor erythroid 2–related factor 2 es uno de los principales reguladores transcripcionales de la respuesta antioxidante y de detoxificación.
En condiciones basales, NRF2 es regulado en gran medida por KEAP1 y degradación proteasomal.
Cuando aumenta el estrés oxidativo, NRF2 puede estabilizarse y activar genes relacionados con:
- antioxidantes;
- metabolismo de glutatión;
- detoxificación;
- respuesta al estrés.
NRF2 conecta directamente:
homeostasis redox ↔︎ proteostasis.
14. NRF2 también regula componentes proteostáticos
Además de sus funciones antioxidantes, NRF2 puede influir sobre:
- proteasoma;
- autofagia;
- metabolismo.
Esto permite que la célula responda simultáneamente a:
daño oxidativo + proteínas dañadas.
La coordinación resulta lógica porque muchas proteínas mal plegadas surgen precisamente por estrés oxidativo.
15. p62 y NRF2
p62/SQSTM1 conecta también autofagia y NRF2.
En determinados contextos, p62 puede interactuar con KEAP1 y favorecer activación de NRF2.
Esto crea un circuito:
estrés → p62/autofagia → NRF2 → defensa antioxidante/proteostática.
La red vuelve a demostrar una enorme interconectividad.
16. HSF1, NRF2 y TFEB como programas de expansión
Estos factores pueden interpretarse como mecanismos destinados a ampliar diferentes dimensiones de la capacidad celular.
HSF1
Aumenta capacidad de chaperonaje.
NRF2
Aumenta defensa redox y detoxificación.
TFEB/TFE3
Aumenta capacidad autofágica-lisosomal.
Estos programas responden a diferentes tipos de estrés, pero se superponen considerablemente.
17. Mitocondrias como sensor y fuente de estrés
Las mitocondrias producen ATP necesario para:
- plegamiento;
- proteasoma;
- transporte;
- autofagia.
Pero también pueden generar señales de estrés.
Cuando se deterioran:
- ATP ↓;
- ROS pueden ↑;
- metabolitos cambian;
- calcio se altera.
Esto repercute inmediatamente sobre proteostasis.
18. Control de calidad proteica mitocondrial
La mitocondria contiene:
- chaperonas;
- proteasas;
- mecanismos de importación;
- sistemas de vigilancia.
Si una proteína mitocondrial se pliega incorrectamente, debe:
- refoldarse;
- degradarse;
- o, si el daño es extenso, eliminarse el organelo mediante mitofagia.
La proteostasis mitocondrial opera así en múltiples escalas.
19. UPR mitocondrial
Las mitocondrias poseen respuestas adaptativas frente a estrés proteico que se agrupan bajo el concepto de mitochondrial unfolded protein response — UPRmt.
En modelos experimentales, esta respuesta puede aumentar:
- chaperonas mitocondriales;
- proteasas;
- programas de adaptación metabólica.
La regulación exacta en humanos continúa siendo objeto de investigación.
20. UPRmt y envejecimiento
Diversos modelos experimentales han relacionado la activación de respuestas de estrés mitocondrial con cambios en longevidad.
Sin embargo, la relación no es lineal.
Un estrés moderado puede activar adaptación.
Un estrés persistente puede producir disfunción.
Por ello, la UPRmt debe interpretarse dentro del principio de hormesis.
21. Comunicación retículo endoplásmico–mitocondria
El retículo endoplásmico y las mitocondrias se encuentran en estrecho contacto.
Las mitochondria-associated membranes (MAMs) participan en:
- intercambio de calcio;
- metabolismo lipídico;
- señalización;
- estrés.
La disfunción de un organelo puede alterar al otro.
Esto será especialmente relevante en el Capítulo III dedicado a estrés del RE.
22. Calcio y proteostasis
El calcio participa en múltiples procesos:
- plegamiento en RE;
- función mitocondrial;
- señalización;
- activación enzimática.
Alteraciones en homeostasis de calcio pueden aumentar:
- estrés del RE;
- disfunción mitocondrial;
- estrés proteotóxico.
Así:
calcio ↔︎ organelos ↔︎ proteostasis.
23. Comunicación entre núcleo y citoplasma
Cuando aumenta el daño proteico, la célula necesita modificar expresión génica.
Los programas proteostáticos requieren comunicación:
citoplasma → núcleo
para activar factores como:
- HSF1;
- NRF2;
- TFEB.
Posteriormente:
núcleo → citoplasma
mediante nuevas proteínas de defensa.
La proteostasis es, por tanto, un sistema de retroalimentación.
24. Epigenética y respuesta proteostática
La accesibilidad de genes relacionados con:
- chaperonas;
- autofagia;
- proteasoma;
- antioxidantes;
depende parcialmente de regulación epigenética.
El CÓDICE 003 estableció que la cromatina no es un simple empaquetamiento del ADN.
Aquí observamos una consecuencia funcional:
una célula debe mantener accesibles los programas genéticos necesarios para responder al estrés.
Con la edad, alteraciones epigenéticas pueden modificar esta capacidad.
25. Pérdida de inducibilidad durante el envejecimiento
Uno de los cambios relevantes puede ser una disminución de la capacidad para amplificar respuestas frente al estrés.
Esto puede afectar:
- HSF1;
- NRF2;
- autofagia;
- otros programas defensivos.
La célula envejecida puede no carecer completamente del sistema.
Puede carecer de reserva dinámica.
26. Reserva Proteostática como capacidad coordinada
La Reserva Proteostática debe entonces ampliarse conceptualmente.
No consiste únicamente en:
- número de chaperonas;
- cantidad de proteasomas;
- número de lisosomas.
Incluye la capacidad para:
- detectar estrés;
- elegir una respuesta;
- redistribuir energía;
- aumentar capacidad;
- resolver el problema;
- regresar a homeostasis.
Esta secuencia representa una verdadera resiliencia molecular.
27. Proteostasis y hormesis
Una exposición moderada a estrés puede activar simultáneamente:
- HSF1;
- NRF2;
- AMPK;
- autofagia.
Esto genera adaptación.
Ejemplos fisiológicos incluyen:
- ejercicio;
- cambios metabólicos transitorios;
- estrés térmico moderado.
Sin embargo, la adaptación solo ocurre si la carga permanece dentro de la capacidad de respuesta.
28. Del estrés adaptativo al estrés tóxico
Puede representarse un continuo:
estrés leve → adaptación
estrés moderado → respuesta defensiva intensa
estrés excesivo o persistente → sobrecarga → disfunción → senescencia/apoptosis.
El umbral depende de:
- edad;
- estado metabólico;
- enfermedad;
- genética;
- capacidad regenerativa.
29. Proteostasis e inflamación
La inflamación puede alterar proteostasis mediante:
- ROS;
- RNS;
- citocinas;
- cambios metabólicos;
- estrés del RE.
A su vez, el daño proteico puede activar respuestas inflamatorias.
Esto genera:
proteotoxicidad ↔︎ inflammaging.
30. NF-κB y proteostasis
NF-κB constituye uno de los principales reguladores de inflamación.
Su activación puede modificar:
- síntesis proteica;
- metabolismo;
- respuesta inmune.
Además, su propia regulación depende del UPS mediante degradación de IκB.
Esto integra directamente:
inflamación ↔︎ ubiquitina-proteasoma.
31. Proteostasis e inmunoproteasoma
Durante inflamación puede cambiar la composición del proteasoma.
El inmunoproteasoma adapta:
- procesamiento de proteínas;
- presentación antigénica;
- respuesta al estrés.
Sin embargo, su activación persistente también refleja un contexto inflamatorio crónico.
La respuesta puede ser adaptativa inicialmente y patológica posteriormente.
32. Inflamación y lisosomas
Las células inmunológicas utilizan intensamente:
- lisosomas;
- autofagia;
- proteasoma.
La inflamación crónica modifica esta maquinaria.
Esto puede alterar la capacidad para resolver daño y mantener calidad proteica.
33. Proteostasis no autónoma de la célula
Uno de los desarrollos conceptuales más importantes de los últimos años es reconocer que la proteostasis puede coordinarse entre células y tejidos.
Una célula no responde únicamente a su propio proteoma.
Puede recibir señales procedentes de:
- neuronas;
- hormonas;
- citocinas;
- metabolitos;
- vesículas extracelulares.
Esto permite una respuesta sistémica.
34. Sistema nervioso y coordinación proteostática
Modelos experimentales han demostrado que circuitos neuronales pueden modificar respuestas de estrés en tejidos periféricos.
Por ejemplo, la percepción de cambios térmicos puede inducir respuestas proteostáticas sistémicas.
Este mecanismo tiene lógica evolutiva.
El organismo puede prepararse para un desafío antes de que cada célula haya sufrido daño directo.
35. Señalización endocrina
Hormonas y factores de crecimiento pueden modificar:
- mTOR;
- AMPK;
- síntesis proteica;
- autofagia.
Por ello, el estado endocrino influye directamente sobre proteostasis.
Insulina e IGF-1 representan ejemplos centrales.
36. Insulina/IGF-1 y proteostasis
La señalización insulina/IGF-1 favorece programas anabólicos.
En distintos modelos de longevidad, modificaciones de estas vías se relacionan con cambios en:
- metabolismo;
- estrés;
- proteostasis.
Pero la traducción a humanos es compleja.
Una inhibición indiscriminada de señalización anabólica podría comprometer:
- músculo;
- reparación;
- inmunidad.
Nuevamente, el objetivo es equilibrio.
37. Vesículas extracelulares
Las células liberan vesículas capaces de transportar:
- proteínas;
- ARN;
- lípidos;
- señales.
En determinados contextos pueden participar en comunicación del estrés.
Incluso existe investigación sobre transferencia de proteínas mal plegadas mediante mecanismos intercelulares.
Sin embargo, esta área requiere especial prudencia.
38. Propagación proteopática
En enfermedades neurodegenerativas se estudia la posibilidad de que determinadas conformaciones proteicas puedan propagarse entre células de manera templada o “prion-like”.
Ejemplos investigados incluyen:
- tau;
- α-sinucleína;
- TDP-43.
Esto no significa que estas enfermedades sean enfermedades priónicas clásicas.
El concepto describe una posible propagación conformacional.
39. Proteostasis sistémica
El organismo completo debe distribuir recursos entre tejidos.
Durante:
- ejercicio;
- infección;
- ayuno;
- lesión;
las prioridades metabólicas cambian.
Por ello, la proteostasis debe integrarse con decisiones fisiológicas sistémicas.
40. Envejecimiento y pérdida de coordinación
Con el envejecimiento puede deteriorarse no solo cada sistema individual, sino su sincronización.
Pueden aparecer:
- respuestas más lentas;
- señales contradictorias;
- activación crónica;
- menor capacidad de resolución.
Esto puede generar una situación en la que:
muchos sistemas siguen presentes, pero ya no trabajan coordinadamente.
41. El concepto de desincronización proteostática
Podemos denominar conceptualmente a este fenómeno:
desincronización proteostática.
No constituye un diagnóstico clínico ni un biomarcador establecido.
Describe una situación en la cual:
- síntesis;
- plegamiento;
- degradación;
- metabolismo;
- inflamación;
dejan de coordinarse adecuadamente.
El resultado es una menor eficiencia global.
42. De la resiliencia molecular a la fragilidad celular
Una célula joven posee margen para:
- aumentar demanda;
- reparar daño;
- recuperar homeostasis.
Cuando disminuye la reserva:
- pequeñas perturbaciones producen efectos mayores;
- la recuperación es más lenta;
- aumentan secuelas.
Esta transición es el equivalente molecular de la fragilidad.
43. Integración con los Hallmarks del Envejecimiento
La coordinación proteostática conecta con prácticamente todos los Hallmarks.
Alteraciones epigenéticas
Pueden reducir inducibilidad de programas defensivos.
Desregulación de nutrient sensing
mTOR, AMPK e insulina/IGF-1 controlan síntesis y degradación.
Disfunción mitocondrial
Modifica ATP, redox y señalización.
Macroautofagia disminuida
Reduce capacidad degradativa.
Senescencia celular
Puede aparecer cuando el estrés no se resuelve.
Agotamiento de células madre
La pérdida de coordinación compromete mantenimiento a largo plazo.
Comunicación intercelular alterada
Modifica la coordinación sistémica de respuestas.
Inflamación crónica
Aumenta continuamente la carga proteotóxica.
Disbiosis
Puede modificar metabolismo e inflamación de forma indirecta.
44. Integración con los CÓDICES 003–008
La Parte 4 representa uno de los mayores puntos de convergencia del Proyecto AETERNUM®.
CÓDICE 003: epigenética regula programas de respuesta.
CÓDICE 004: inflammaging aumenta presión proteostática.
CÓDICE 005: mitocondrias aportan energía y señales.
CÓDICE 006: redox determina parte del daño proteico y activa NRF2.
CÓDICE 007: autofagia y lisosomas ejecutan degradación.
CÓDICE 008: estrés no resuelto puede contribuir a senescencia y pérdida regenerativa.
El CÓDICE 009 integra estos mecanismos alrededor del proteoma funcional.
45. Integración con el Modelo IXUGEN®
Dentro del Modelo IXUGEN®, esta coordinación permite comprender por qué la Reserva Molecular no puede mantenerse de forma aislada.
Reserva Molecular
Chaperonas, UPS y autofagia conservan calidad proteica.
Reserva Metabólica
mTOR, AMPK y mitocondrias proporcionan energía y determinan prioridades.
Reserva Inmunológica
Inflamación modifica carga y respuesta.
Reserva Regenerativa
Permite sustituir células cuando el daño supera la capacidad reparadora.
Reserva Funcional
Refleja el resultado final de la coordinación entre todos estos sistemas.
La Resiliencia Biológica surge cuando estas reservas pueden cambiar temporalmente de prioridad y regresar posteriormente al equilibrio.
Aplicaciones Clínicas
La coordinación proteostática no puede medirse actualmente mediante un único análisis clínico.
En investigación pueden estudiarse:
- HSF1;
- HSP;
- actividad proteasomal;
- autofagia;
- TFEB;
- NRF2;
- marcadores metabólicos;
- metabolómica;
- proteómica.
Pero una medición estática ofrece información limitada.
El verdadero fenómeno es dinámico:
capacidad de responder y recuperar.
Esta limitación constituye una de las razones por las que todavía resulta difícil traducir la proteostasis a una prueba clínica de “edad proteica”.
Mito
“mTOR debe mantenerse siempre bajo para favorecer longevidad.”
Realidad
mTOR es esencial para síntesis, reparación y función. La fisiología depende de una regulación dinámica.
Mito
“AMPK y mTOR son simplemente dos interruptores opuestos.”
Realidad
Forman parte de redes metabólicas complejas con interacción dependiente del contexto.
Mito
“TFEB controla únicamente lisosomas.”
Realidad
Regula programas amplios de autofagia, degradación y metabolismo.
Mito
“NRF2 es solamente un sistema antioxidante.”
Realidad
También interactúa con proteasoma, autofagia y metabolismo celular.
Mito
“Una respuesta de estrés elevada siempre implica enfermedad.”
Realidad
Muchas respuestas son inicialmente adaptativas. El problema aparece cuando son insuficientes, excesivas o persistentes.
Mito
“Una célula mantiene su proteostasis de manera completamente autónoma.”
Realidad
Existen señales neuronales, endocrinas, inmunológicas y metabólicas que coordinan respuestas entre tejidos.
La proteostasis es una red de prioridades. Una célula debe saber cuándo producir, cuándo detenerse, cuándo reparar, cuándo degradar y cuándo reciclar. HSF1, mTOR, AMPK, TFEB, NRF2 y las señales provenientes de mitocondrias e inmunidad forman parte de un sistema coordinador que convierte el mantenimiento del proteoma en una respuesta dinámica. El envejecimiento comienza a comprometer no solo las piezas individuales, sino la capacidad de hacerlas trabajar juntas en el momento correcto.
- La proteostasis requiere asignación dinámica de energía y recursos.
- mTOR favorece anabolismo y reduce autofagia en determinados contextos.
- AMPK conecta déficit energético con programas de conservación y reciclaje.
- TFEB expande capacidad autofágica-lisosomal.
- NRF2 conecta redox con defensa proteostática.
- HSF1 aumenta capacidad de chaperonaje.
- Mitocondrias son simultáneamente fuente de energía y señal de estrés.
- El RE y las mitocondrias se comunican estrechamente.
- La inducibilidad de las respuestas constituye parte de la Reserva Proteostática.
- Proteostasis puede coordinarse entre tejidos.
- El envejecimiento puede producir pérdida de sincronización entre sistemas.
- La Resiliencia Molecular depende de detectar, responder, resolver y recuperar.
Al finalizar esta cuarta parte deben quedar establecidos los siguientes principios:
- La red de proteostasis requiere coordinación metabólica y transcripcional.
- La síntesis proteica debe ajustarse a la capacidad de plegamiento y degradación.
- mTOR integra señales anabólicas y disponibilidad de nutrientes.
- AMPK favorece adaptación frente a déficit energético.
- TFEB y TFE3 regulan capacidad autofágica-lisosomal.
- NRF2 integra respuesta redox y control de calidad.
- HSF1 regula la expansión de la capacidad de chaperonaje.
- Mitocondrias y RE participan activamente en señalización proteostática.
- La Reserva Proteostática incluye capacidad inducible, no solo actividad basal.
- La hormesis depende de dosis y capacidad individual.
- La proteostasis puede regularse a nivel sistémico y no únicamente celular.
- El envejecimiento puede producir desincronización entre síntesis, reparación y degradación.
- La coordinación entre reservas biológicas constituye una expresión fundamental de Resiliencia Biológica.
Introducción
La célula no dispone de un único sistema encargado de preservar la calidad de sus proteínas.
Posee una red distribuida y jerárquica capaz de detectar problemas conformacionales desde los primeros segundos de vida de una proteína y continuar vigilándola hasta su degradación final.
Las cuatro partes anteriores reconstruyeron los principales componentes de esta red:
chaperonas moleculares y Heat Shock Response
↓
triage proteico
↓
ubiquitina–proteasoma
↔︎
autofagia–lisosoma
↓
reciclaje molecular
Pero el verdadero significado biológico del sistema emerge únicamente cuando estos mecanismos se interpretan como una sola unidad funcional.
La célula debe responder continuamente a una pregunta:
¿qué debe ocurrir con esta proteína para preservar la integridad del proteoma completo?
En algunas ocasiones la respuesta será:
plegar.
En otras:
refoldar.
En otras:
contener.
En otras:
ubiquitinar.
En otras:
degradar mediante proteasoma.
Y cuando la carga molecular sea demasiado compleja:
secuestrar, autofagocitar y degradar en el lisosoma.
La proteostasis constituye, por tanto, una red de decisiones sucesivas destinadas a conservar el máximo de función con el mínimo de daño.
1. La red comienza durante la síntesis
El control de calidad no comienza cuando aparece una proteína mal plegada.
Empieza durante la traducción.
La cadena naciente se encuentra inmediatamente expuesta a:
- chaperonas asociadas al ribosoma;
- señales de targeting;
- mecanismos de control de calidad traduccional;
- ribosome-associated quality control.
Por ello, síntesis y control de calidad son procesos inseparables.
Una proteína defectuosa puede ser detectada incluso antes de completar su síntesis.
2. Primera decisión: ¿puede plegarse?
El primer objetivo es permitir que la cadena polipeptídica alcance una conformación funcional.
Participan:
- HSP70;
- HSP40/DNAJ;
- HSP90;
- chaperoninas;
- pequeñas HSP;
- cochaperonas.
Si el plegamiento progresa adecuadamente:
proteína funcional → proteoma activo.
Si aparecen estados vulnerables:
chaperonas → estabilización → nuevos intentos de plegamiento.
3. Segunda decisión: ¿puede recuperarse?
Una proteína funcional puede dañarse posteriormente.
Las chaperonas vuelven a participar.
El sistema intenta determinar si el daño es:
- reversible;
- parcialmente reversible;
- irreversible.
Cuando existe posibilidad de recuperación:
refolding.
Cuando no existe:
triage hacia degradación.
Esta transición es fundamental.
4. Triage molecular
El triage proteico evita dos errores opuestos.
Error 1
Eliminar proteínas todavía recuperables.
Error 2
Mantener proteínas irreversiblemente dañadas.
La eficiencia de la red depende de encontrar un equilibrio.
Las chaperonas y cochaperonas permiten conectar reconocimiento conformacional con sistemas de degradación.
CHIP/STUB1 constituye uno de los ejemplos más claros de esta transición.
5. Ubiquitina como sistema de direccionamiento
Cuando se decide que una proteína debe cambiar de destino, la ubiquitina puede actuar como señal.
La cascada:
E1 → E2 → E3
permite seleccionar sustratos específicos.
La arquitectura de la señal de ubiquitina ayuda a determinar si el sustrato participará en:
- degradación;
- tráfico;
- reparación;
- señalización;
- autofagia.
Por tanto, ubiquitina funciona como un lenguaje de control de calidad.
6. Proteasoma: precisión molecular
El proteasoma 26S constituye una maquinaria altamente especializada para degradar numerosas proteínas individuales.
Su secuencia funcional incluye:
reconocimiento
↓
desubiquitinación
↓
desplegamiento
↓
translocación
↓
proteólisis
↓
reciclaje.
El proteasoma no representa simplemente destrucción.
Representa una forma extremadamente precisa de renovación molecular.
7. El límite físico del proteasoma
No todas las estructuras pueden atravesar el proteasoma.
Los agregados grandes, complejos altamente organizados y organelos completos requieren otra estrategia.
Aquí entra en funcionamiento:
autofagia–lisosoma.
El proteasoma y la autofagia trabajan en escalas diferentes del mismo problema.
8. Autofagia como control de calidad macromolecular
La macroautofagia permite envolver material intracelular dentro de autofagosomas.
Puede capturar:
- agregados;
- complejos proteicos;
- regiones citoplasmáticas;
- organelos.
Cuando el reconocimiento es selectivo, adaptadores como:
- p62/SQSTM1;
- NBR1;
- OPTN;
- NDP52;
conectan la carga con proteínas de la familia LC3/GABARAP.
Así:
daño → reconocimiento → encapsulamiento → lisosoma.
9. Agrefagia
La agrefagia representa una de las expresiones más directas de la cooperación entre sistemas.
Un agregado puede contener proteínas ubiquitinadas.
Estas señales son reconocidas por receptores autofágicos.
El material es entonces dirigido al autofagosoma.
La secuencia conecta:
ubiquitina → autofagia → lisosoma.
Esto confirma que ubiquitina no pertenece exclusivamente al proteasoma.
10. CMA como puente entre chaperonas y lisosoma
La autofagia mediada por chaperonas demuestra otra forma de integración.
Una proteína soluble puede ser:
- reconocida por Hsc70;
- dirigida hacia LAMP2A;
- desplegada;
- translocada al lisosoma;
- degradada.
Así:
chaperona → selección → lisosoma.
La red de proteostasis posee múltiples caminos hacia un mismo objetivo.
11. El lisosoma como punto de convergencia
El lisosoma recibe material procedente de:
- macroautofagia;
- CMA;
- endocitosis;
- diferentes vías selectivas.
Además, genera:
- aminoácidos;
- metabolitos;
- componentes reutilizables.
El lisosoma constituye por tanto un nodo donde convergen:
control de calidad + metabolismo + señalización.
12. El reciclaje completa la proteostasis
La proteostasis no termina con la destrucción.
El material degradado vuelve al metabolismo celular.
Los aminoácidos pueden ser reutilizados para:
- nueva síntesis;
- producción energética;
- biosíntesis de otras moléculas.
El ciclo completo es:
síntesis → uso → daño → degradación → reciclaje → nueva síntesis.
Esta circularidad explica por qué proteostasis y metabolismo son inseparables.
13. Coordinación entre producción y eliminación
La célula debe ajustar continuamente:
síntesis proteica
con
capacidad degradativa.
Una síntesis muy elevada frente a capacidad proteostática limitada favorece:
- proteínas no plegadas;
- estrés del RE;
- sobrecarga de chaperonas;
- agregación.
Una degradación excesiva puede producir:
- pérdida de proteínas funcionales;
- catabolismo tisular;
- atrofia.
La homeostasis depende de equilibrio dinámico.
14. mTOR, AMPK y la decisión anabólica
mTOR y AMPK ayudan a determinar cómo distribuir recursos.
mTORC1
Favorece:
- síntesis;
- crecimiento;
- biogénesis ribosomal.
AMPK
Favorece:
- ahorro energético;
- reciclaje;
- autofagia en determinados contextos.
No se trata de mantener una vía “encendida” y otra “apagada”.
La salud requiere capacidad para alternar entre ambas.
15. HSF1, NRF2 y TFEB: expansión de la reserva
La red posee mecanismos capaces de aumentar temporalmente su capacidad.
HSF1
Aumenta chaperonas.
NRF2
Amplía defensa redox y detoxificación.
TFEB/TFE3
Amplían el sistema autofágico-lisosomal.
Estos factores pueden interpretarse como reguladores de:
Reserva Proteostática Inducible
Es decir, la capacidad de aumentar las defensas cuando la carga supera el nivel basal.
16. La importancia de la inducibilidad
Una célula puede presentar niveles basales aparentemente normales de:
- HSP;
- proteasoma;
- lisosomas.
Sin embargo, ante una carga intensa puede no aumentar suficientemente su respuesta.
Por ello, la función de proteostasis no depende solo de:
cantidad en reposo
sino de:
capacidad de respuesta dinámica.
Este principio será especialmente importante para comprender el envejecimiento.
17. Proteostasis y ATP
Gran parte de la red requiere energía.
El ATP participa en:
- HSP70;
- HSP90;
- ubiquitinación;
- proteasoma 26S;
- transporte intracelular;
- formación y tráfico autofágico.
Por ello, la disfunción mitocondrial puede comprometer simultáneamente múltiples brazos de la red.
La relación es bidireccional.
18. Proteostasis y función mitocondrial
Las mitocondrias necesitan mantener sus propias proteínas correctamente:
- importadas;
- plegadas;
- ensambladas;
- degradadas.
Si esta calidad disminuye:
- respiración puede alterarse;
- ATP puede disminuir;
- ROS pueden aumentar.
Estos cambios incrementan a su vez la presión sobre el proteoma celular.
Se establece un circuito:
disfunción mitocondrial → estrés proteotóxico → mayor disfunción mitocondrial.
19. Proteostasis y homeostasis redox
Las proteínas constituyen uno de los principales blancos del estrés oxidativo.
El daño redox puede producir:
- carbonilación;
- oxidación de cisteínas;
- modificaciones en metionina;
- pérdida conformacional.
El sistema debe entonces:
- reparar determinadas modificaciones;
- refoldar;
- degradar.
La red proteostática representa, por tanto, uno de los principales sistemas efectores de la homeostasis redox.
20. Inflamación como carga proteostática
La inflamación persistente aumenta:
- ROS;
- RNS;
- síntesis de proteínas inflamatorias;
- demanda metabólica;
- estrés del RE.
Todo ello incrementa la carga sobre:
- chaperonas;
- proteasoma;
- autofagia.
Por ello, el inflammaging puede reducir progresivamente el margen de Reserva Proteostática.
21. Proteostasis como reguladora de inflamación
La relación también ocurre en sentido contrario.
El sistema ubiquitina-proteasoma regula NF-κB.
La autofagia participa en control de:
- inflammasomas;
- organelos dañados;
- señales inmunológicas.
El proteoma y la inflamación están conectados en un circuito de doble dirección.
22. Proteostasis y senescencia celular
Cuando la célula no consigue resolver estrés molecular persistente, puede activar programas de senescencia.
La senescencia protege inicialmente frente a proliferación de células comprometidas.
Pero las células senescentes producen SASP.
Esto puede generar:
senescencia → inflamación → mayor carga proteotóxica.
La pérdida de proteostasis puede así propagarse dentro del tejido.
23. Proteostasis y células madre
Las células madre requieren una regulación particularmente estricta del proteoma.
Durante quiescencia deben:
- limitar daño;
- controlar mitocondrias;
- conservar proteínas esenciales;
- mantener capacidad de respuesta.
Cuando activan proliferación aumenta la demanda de síntesis.
Su éxito depende de una transición eficiente entre estados proteostáticos.
El deterioro de esta capacidad contribuye a pérdida de Reserva Regenerativa.
24. Vulnerabilidad de tejidos de larga vida
Las neuronas y cardiomiocitos presentan especial vulnerabilidad porque muchas células deben mantenerse durante décadas.
No pueden resolver el daño simplemente reemplazándose rápidamente.
Esto aumenta la dependencia de:
- chaperonas;
- proteasoma;
- autofagia;
- lisosomas.
La longevidad celular exige una proteostasis particularmente eficiente.
25. Cerebro
En el sistema nervioso, proteínas como:
- tau;
- α-sinucleína;
- TDP-43;
representan ejemplos de proteínas cuya alteración conformacional puede desafiar la red.
Sin embargo, la enfermedad no depende únicamente de la proteína.
También depende de:
- capacidad degradativa;
- mitocondrias;
- inflamación;
- transporte axonal;
- edad.
Esta perspectiva será desarrollada en el Capítulo IV.
26. Músculo
El músculo debe renovar continuamente:
- actina;
- miosina;
- proteínas sarcoméricas;
- mitocondrias.
El balance proteostático muscular depende de:
síntesis ↔︎ degradación.
Envejecimiento, inactividad y enfermedad pueden alterar ambos lados.
Esto contribuye a sarcopenia y pérdida de función.
27. Hígado
El hígado posee una intensa actividad de:
- síntesis;
- metabolismo;
- secreción;
- detoxificación.
Su proteostasis se encuentra especialmente vinculada con:
- retículo endoplásmico;
- UPR;
- metabolismo lipídico;
- insulina.
El Capítulo III permitirá comprender por qué el RE constituye un nodo proteostático crítico para el hígado.
28. Sistema inmunológico
Las células inmunes deben remodelar rápidamente su proteoma durante activación.
La producción de:
- inmunoglobulinas;
- citocinas;
- receptores;
puede aumentar dramáticamente.
Esto genera una enorme demanda sobre:
- RE;
- UPR;
- proteasoma;
- autofagia.
Por ello, inmunidad y proteostasis se encuentran íntimamente conectadas.
29. El envejecimiento no implica un único fallo
Uno de los principios fundamentales del capítulo es evitar una interpretación simplista.
La pérdida de proteostasis no significa necesariamente:
- menor HSP;
- menor proteasoma;
- menor autofagia.
En realidad puede incluir:
- reducción;
- compensación;
- remodelación;
- desincronización;
- pérdida de inducibilidad.
La red envejece como sistema.
30. Colapso proteostático como pérdida de integración
El término colapso proteostático puede definirse de manera funcional como:
situación en la que la capacidad coordinada de reconocimiento, plegamiento, degradación y reciclaje resulta insuficiente frente a la carga de daño.
No requiere que todos los sistemas fallen.
Puede aparecer porque:
- un cuello de botella limita toda la red;
- la carga supera la reserva;
- varios déficits moderados convergen.
31. Posibles cuellos de botella
Algunos ejemplos incluyen:
- chaperonas insuficientes;
- sobrecarga proteasomal;
- bloqueo de flujo autofágico;
- lisosomas poco eficientes;
- déficit energético;
- estrés del RE persistente.
Un único cuello de botella puede alterar procesos aguas arriba y aguas abajo.
32. La red como sistema de flujo
Esto permite visualizar la proteostasis como un sistema de tránsito.
Si:
entrada > procesamiento > salida
se produce acumulación.
La célula debe equilibrar:
síntesis
con
capacidad de procesamiento
y
capacidad de eliminación.
Este modelo será útil para entender el estrés del retículo endoplásmico.
33. Aplicaciones Clínicas integradas
Actualmente, la red molecular de proteostasis no puede evaluarse mediante una única prueba clínica.
Las aproximaciones experimentales incluyen:
- HSP;
- actividad HSF1;
- ubiquitinación;
- actividad proteasomal;
- inmunoproteasoma;
- LC3;
- p62;
- LAMP2A;
- función lisosomal;
- TFEB;
- proteómica.
Pero estos parámetros representan únicamente fragmentos del sistema.
Además, muchos varían según:
- tejido;
- estímulo;
- momento;
- enfermedad.
Por ello, medir proteostasis requiere analizar redes y dinámica.
34. El problema de los biomarcadores estáticos
Una concentración aislada de HSP70 no informa necesariamente:
- capacidad inducible;
- velocidad de respuesta;
- eficacia de refolding.
Una cantidad elevada de p62 tampoco informa por sí sola si:
- aumentó producción;
- disminuyó degradación.
La biología dinámica no puede reducirse fácilmente a una fotografía.
35. La necesidad de pruebas funcionales
El futuro probablemente requerirá combinar:
- biomarcadores;
- proteómica;
- análisis funcional;
- respuestas a desafíos estandarizados.
En teoría, una prueba de reserva debería valorar:
estado basal + respuesta al estrés + recuperación.
Este enfoque sería conceptualmente más cercano a la Resiliencia Biológica.
Sin embargo, todavía no existe una metodología clínica consolidada para medir de esta forma la proteostasis humana.
36. Intervenciones y prudencia científica
El conocimiento mecanístico permite identificar numerosas posibles intervenciones.
Pero activar un componente de la red no significa necesariamente mejorar toda la proteostasis.
Por ejemplo:
- aumentar HSP puede ser contextual;
- inhibir mTOR puede comprometer anabolismo;
- aumentar autofagosomas sin mejorar lisosomas puede ser inútil;
- incrementar proteólisis puede favorecer pérdida muscular.
Por ello:
la red debe tratarse como red.
Integración definitiva con los Hallmarks del Envejecimiento
La red molecular de proteostasis se encuentra en el centro de múltiples Hallmarks.
Inestabilidad genómica
Proteínas de reparación del ADN dependen de proteostasis, mientras mutaciones pueden crear proteínas defectuosas.
Alteraciones epigenéticas
Regulan genes de HSP, proteasoma, autofagia y respuesta al estrés.
Pérdida de proteostasis
Representa directamente el Hallmark desarrollado en este códice.
Discapacidad de la macroautofagia
Reduce el manejo de agregados y organelos dañados.
Desregulación de nutrient sensing
mTOR, AMPK e insulina/IGF-1 determinan prioridades de síntesis y degradación.
Disfunción mitocondrial
Aumenta estrés redox y reduce energía disponible.
Senescencia celular
Puede aparecer cuando el estrés se vuelve persistente.
Agotamiento de células madre
La pérdida de calidad molecular compromete autorrenovación y regeneración.
Comunicación intercelular alterada
Proteostasis puede coordinarse entre tejidos y verse afectada por SASP.
Inflamación crónica
Aumenta de forma continua la carga de estrés.
Disbiosis
Puede contribuir indirectamente mediante metabolismo e inflamación sistémica.
La conclusión es clara:
LA RED DE PROTEOSTASIS ES UNO DE LOS PRINCIPALES NODOS DE CONVERGENCIA DEL ENVEJECIMIENTO.
Integración definitiva con el Modelo IXUGEN®
Dentro del Modelo IXUGEN® de Longevidad Saludable, la red molecular de proteostasis se ubica principalmente dentro de la:
RESERVA MOLECULAR
Pero depende directamente de todas las demás.
Reserva Molecular
Mantiene la calidad del proteoma mediante:
- plegamiento;
- vigilancia;
- degradación;
- reciclaje.
Reserva Metabólica
Proporciona:
- ATP;
- aminoácidos;
- flexibilidad energética.
Reserva Inmunológica
Modula:
- inflammaging;
- inmunoproteasoma;
- presión inflamatoria.
Reserva Regenerativa
Permite sustituir células cuando el daño supera capacidad reparadora.
Reserva Funcional
Representa la expresión clínica final de la integridad molecular.
La red de proteostasis constituye así un ejemplo perfecto de la lógica IXUGEN®:
la Resiliencia Biológica no depende de evitar todo daño, sino de conservar suficiente reserva para reconocerlo, contenerlo, resolverlo y recuperar la función.
Mito
“Existe un único sistema encargado de destruir proteínas dañadas.”
Realidad
Chaperonas, UPS, autofagia, CMA y lisosomas forman una red integrada con funciones complementarias.
Mito
“El proteasoma es siempre la primera opción de degradación.”
Realidad
El destino depende de tamaño, solubilidad, localización, señalización y estado del sustrato.
Mito
“La autofagia sustituye al proteasoma cuando este falla.”
Realidad
Puede compensar parcialmente determinadas cargas, pero ambos sistemas poseen funciones no intercambiables.
Mito
“Activar simultáneamente todos los sistemas de proteostasis sería ideal.”
Realidad
La regulación debe ser contextual. Síntesis, reparación y degradación necesitan equilibrio temporal.
Mito
“El envejecimiento simplemente reduce todos los sistemas de control de calidad.”
Realidad
Produce una remodelación heterogénea que puede incluir disminución, compensación, saturación y pérdida de coordinación.
La proteostasis no es una colección de mecanismos de limpieza. Es una red de decisiones moleculares que distribuye recursos entre preservar, reparar, destruir y reciclar. La longevidad celular depende de que estas decisiones sean suficientemente rápidas, específicas y coordinadas. Cuando el envejecimiento reduce la capacidad de sincronizar chaperonas, proteasoma, autofagia, lisosomas y metabolismo, disminuye la Reserva Molecular incluso antes de que aparezca una pérdida completa de cualquiera de estos sistemas.
- Chaperonas, UPS y autofagia forman una única red funcional.
- El control de calidad comienza durante la traducción.
- El triage determina cuándo reparar y cuándo degradar.
- Ubiquitina funciona como señal proteasomal y autofágica.
- El proteasoma maneja especialmente proteínas individuales y solubles.
- Autofagia maneja estructuras de mayor escala.
- CMA conecta chaperonas directamente con lisosomas.
- El lisosoma representa el punto final de muchas rutas degradativas.
- El flujo completo importa más que la activación aislada de una etapa.
- HSF1, NRF2 y TFEB expanden diferentes dimensiones de la reserva proteostática.
- mTOR y AMPK coordinan síntesis y reciclaje.
- La energía mitocondrial condiciona prácticamente toda la red.
- El envejecimiento puede alterar la coordinación antes de abolir funciones individuales.
- No existe actualmente un biomarcador único de la red completa.
Al finalizar el Capítulo II deben quedar establecidos los siguientes principios:
- La red de proteostasis controla proteínas desde su síntesis hasta su reciclaje.
- Chaperonas constituyen la primera línea de defensa conformacional.
- HSF1 permite aumentar la capacidad de chaperonaje frente al estrés.
- Ubiquitina constituye un sistema de direccionamiento molecular.
- E1, E2 y E3 permiten seleccionar sustratos con alta especificidad.
- El proteasoma 26S degrada numerosas proteínas individuales.
- Autofagia permite manejar agregados, complejos y organelos.
- Agrefagia representa una forma selectiva de eliminación de agregados.
- CMA conecta chaperonas con degradación lisosomal.
- Los lisosomas constituyen centros de degradación, reciclaje y señalización.
- UPS y autofagia son complementarios y parcialmente compensatorios.
- HSF1, NRF2 y TFEB regulan diferentes brazos de la respuesta al estrés.
- mTOR y AMPK coordinan anabolismo y reciclaje.
- Mitocondrias aportan energía y generan señales que modifican la red.
- El envejecimiento puede producir pérdida de inducibilidad y sincronización proteostática.
- La proteostasis representa una dimensión central de la Reserva Molecular.
- La Resiliencia Biológica depende de detectar, responder, resolver y recuperar.
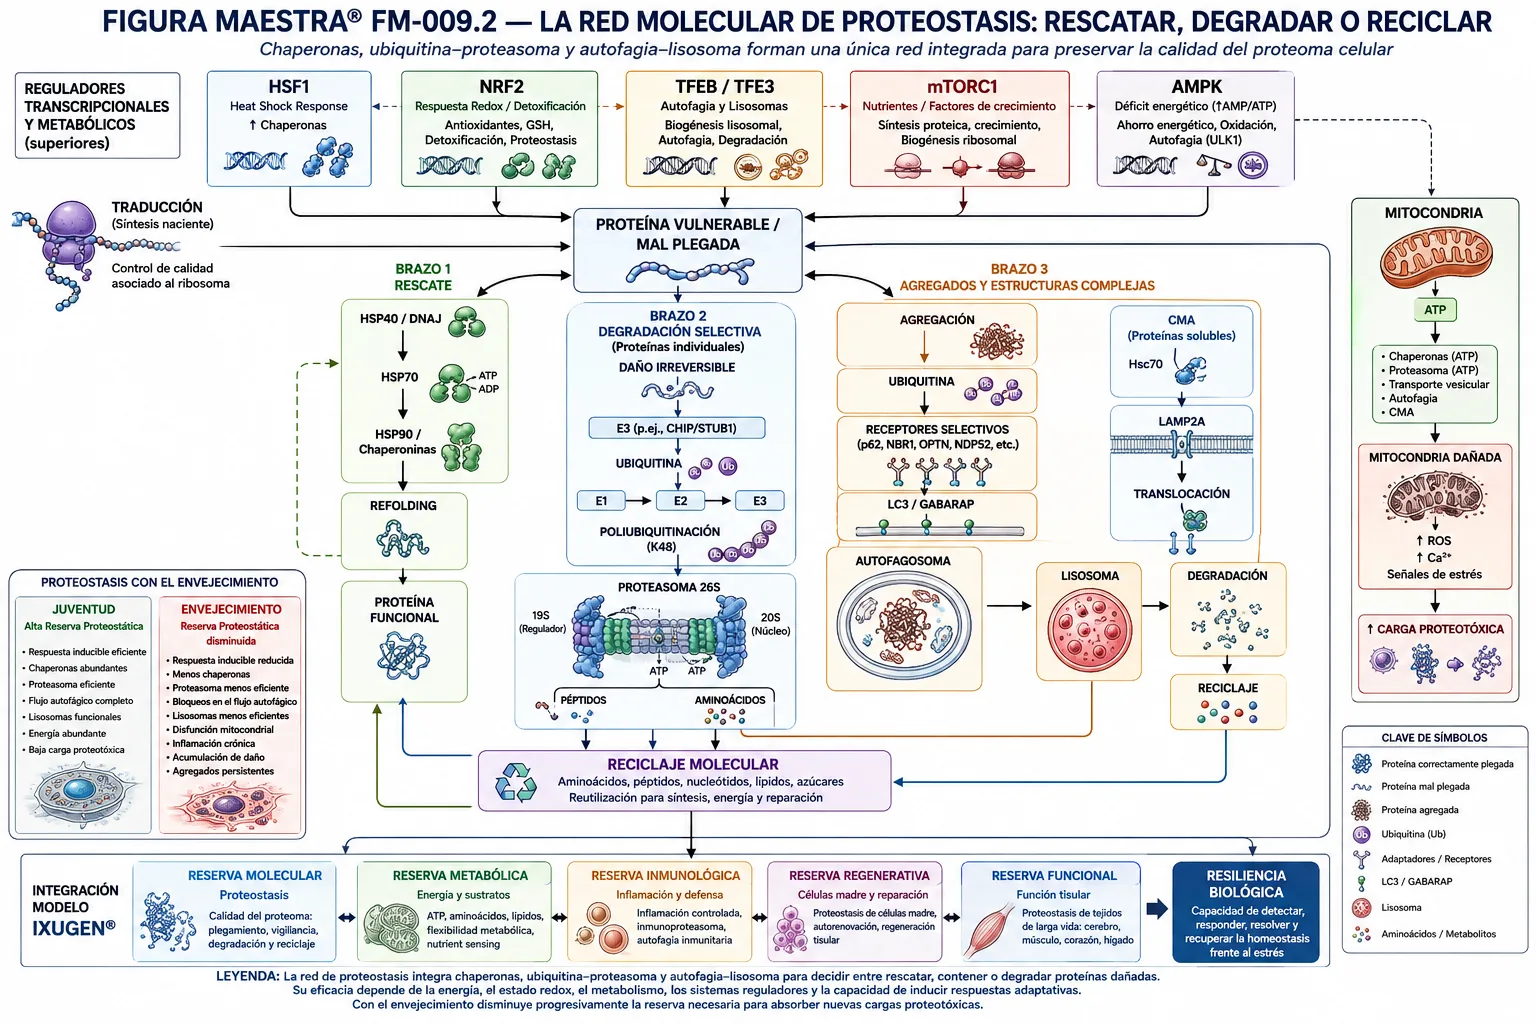
Bibliografía seleccionada del Capítulo II
Chaperonas y Heat Shock Response
- Hartl FU, Bracher A, Hayer-Hartl M. Revisiones fundamentales sobre plegamiento proteico y chaperonas moleculares.
- Balchin D, Hayer-Hartl M, Hartl FU. Estudios sobre sistemas de chaperonas.
- Morimoto RI. Trabajos fundamentales sobre Heat Shock Response y proteostasis.
- Labbadia J, Morimoto RI. Revisiones sobre respuestas de estrés y envejecimiento.
HSP70 / HSP90
- Mayer MP, Bukau B. Estudios fundamentales sobre el ciclo funcional de HSP70.
- Taipale M, Jarosz DF, Lindquist S. Trabajos sobre HSP90 y proteínas cliente.
- Rosenzweig R, Nillegoda NB, Mayer MP, Bukau B. Revisiones sobre cooperación entre chaperonas.
Sistema ubiquitina–proteasoma
- Hershko A, Ciechanover A. Estudios fundacionales de ubiquitina.
- Ciechanover A. Revisiones sobre degradación selectiva.
- Finley D. Revisiones sobre estructura y función del proteasoma.
- Collins GA, Goldberg AL. Trabajos sobre arquitectura y regulación proteasomal.
Autofagia y lisosomas
- Mizushima N, Levine B. Revisiones fundamentales sobre autofagia.
- Dikic I, Elazar Z. Revisiones sobre autofagia selectiva.
- Cuervo AM. Trabajos fundamentales sobre CMA y envejecimiento.
- Settembre C, Ballabio A. Estudios sobre TFEB y biogénesis lisosomal.
Proteostasis y metabolismo
- Laplante M, Sabatini DM. Revisiones sobre mTOR.
- Hardie DG. Revisiones sobre AMPK.
- Saxton RA, Sabatini DM. Estudios integradores sobre nutrient sensing.
NRF2 y respuesta al estrés
- Yamamoto M, Kensler TW, Motohashi H. Revisiones sobre NRF2.
- Dodson M, Redmann M, Rajasekaran NS, Darley-Usmar V, Zhang J. Trabajos sobre NRF2, autofagia y proteostasis.
Proteostasis y envejecimiento
- López-Otín C, et al. The Hallmarks of Aging.
- López-Otín C, et al. Hallmarks of Aging: An Expanding Universe.
- Hipp MS, Kasturi P, Hartl FU. Revisiones sobre proteostasis y enfermedad.
- Klaips CL, Jayaraj GG, Hartl FU. Revisiones sobre proteostasis y envejecimiento.
Revistas prioritarias para actualización
- Nature
- Cell
- Science
- Nature Aging
- Nature Reviews Molecular Cell Biology
- Molecular Cell
- Cell Metabolism
- Autophagy
- EMBO Journal
- Aging Cell
Conclusión del Capítulo II
La célula mantiene la calidad de su proteoma mediante una red de vigilancia extraordinariamente integrada.
Las chaperonas constituyen la primera línea de defensa frente a estados conformacionales vulnerables. HSF1 amplifica esta capacidad cuando aumenta la carga de proteínas desplegadas. Cuando una proteína deja de ser recuperable, el sistema ubiquitina–proteasoma permite seleccionarla y degradarla con alta especificidad. Cuando la carga supera la escala física del proteasoma, la autofagia y los lisosomas permiten eliminar agregados, complejos y organelos completos.
Estas vías no actúan de manera independiente.
Ubiquitina conecta proteasoma y autofagia.
CMA conecta chaperonas y lisosomas.
CHIP conecta chaperonas y ubiquitinación.
PINK1/Parkin conectan ubiquitina y mitofagia.
mTOR, AMPK, HSF1, NRF2 y TFEB coordinan la asignación de recursos entre síntesis, defensa, degradación y reciclaje.
La proteostasis debe entenderse, por tanto, como un sistema integrado de gobernanza molecular.
El envejecimiento puede afectar a esta red en múltiples niveles: aumentar la carga de daño, disminuir capacidad basal, reducir inducibilidad, generar cuellos de botella y comprometer la coordinación entre diferentes componentes.
Desde la perspectiva del Modelo IXUGEN®, la integridad de esta red constituye uno de los componentes esenciales de la Reserva Molecular.
Mientras la red conserva suficiente capacidad para responder y recuperar la homeostasis, existe resiliencia.
Cuando la carga proteotóxica comienza a superar de manera sostenida esa reserva, aumenta la vulnerabilidad celular, se favorecen inflamación y senescencia, y disminuye progresivamente la capacidad funcional y regenerativa.
El Capítulo II establece así la maquinaria molecular encargada de mantener el proteoma.
El siguiente paso será analizar uno de los escenarios en los que esta maquinaria enfrenta su desafío más importante.
Contenido educativo de la Biblioteca Científica AETERNUM® de IXUGEN®. No sustituye la valoración médica individual ni debe utilizarse para autodiagnóstico o tratamiento.